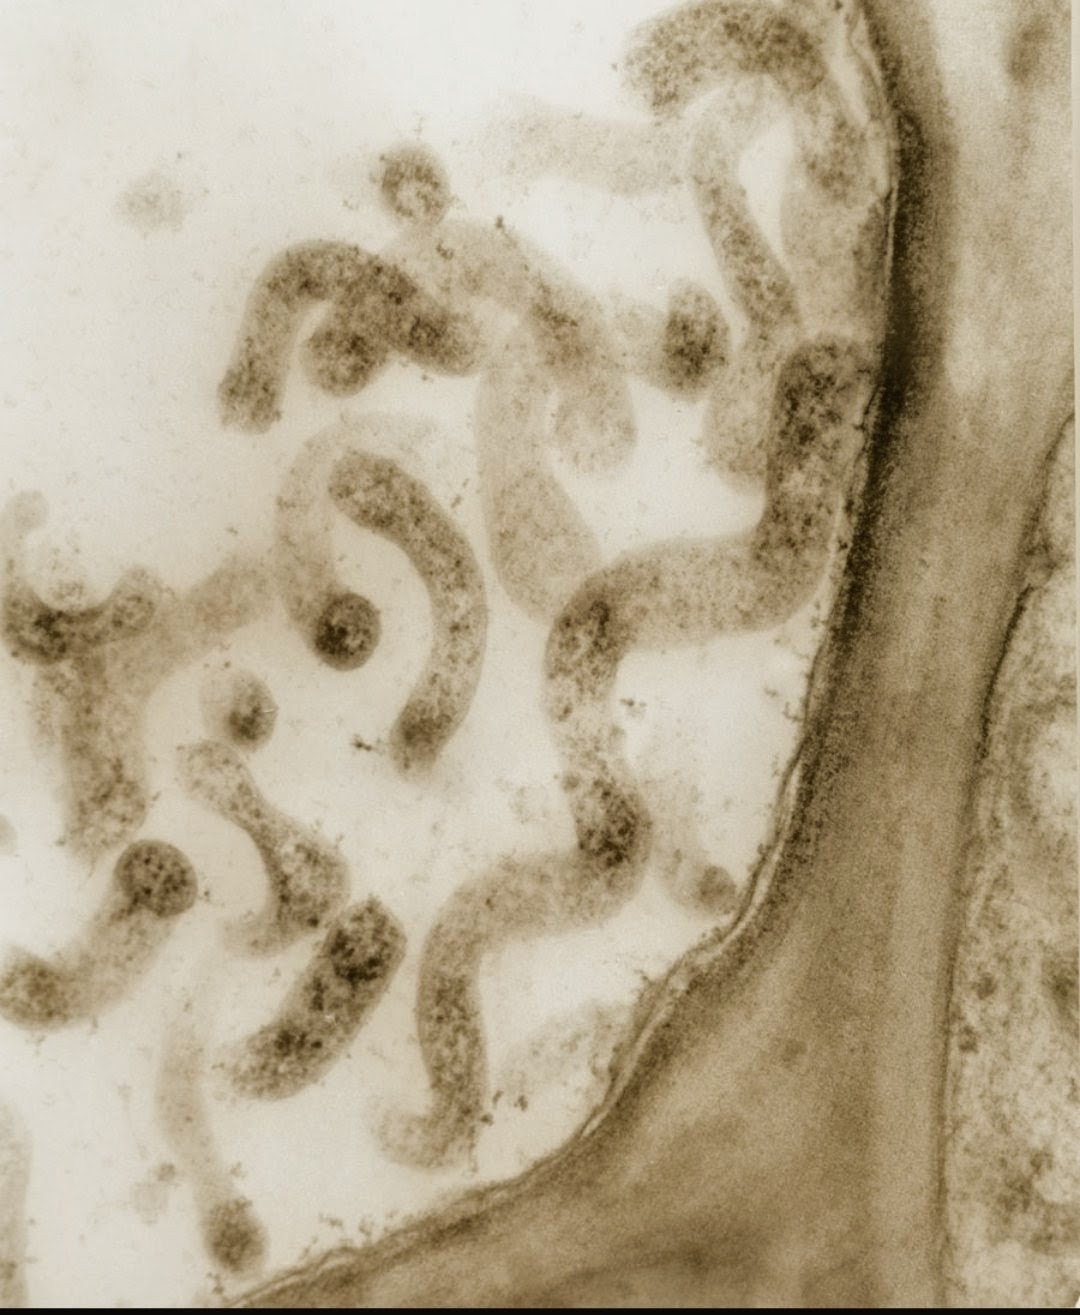
Spiroplasma: il batterio che uccide i maschi degli insetti
Tra i microrganismi capaci di manipolare profondamente la biologia degli insetti, pochi sono spettacolari quanto Spiroplasma. Il suo nome richiama immediatamente la particolare morfologia elicoidale di questi batteri, ma dietro una…
Spiroplasma: il batterio che uccide i maschi degli insetti
Tra i microrganismi capaci di manipolare profondamente la biologia degli insetti, pochi sono spettacolari quanto Spiroplasma. Il suo nome richiama immediatamente la particolare morfologia elicoidale di questi batteri, ma dietro una struttura microscopica apparentemente semplice si nasconde una delle più sofisticate forme di interazione tra un microrganismo e il proprio ospite animale.
Spiroplasma comprende batteri appartenenti alla classe Mollicutes, caratterizzati da dimensioni ridotte, assenza della parete cellulare e notevole flessibilità morfologica. Alcune specie sono associate alle piante, altre agli artropodi, e all'interno di questo genere si incontrano forme patogene, commensali, mutualistiche e simbionti ereditati verticalmente. Alcune delle associazioni più celebri sono quelle nelle quali Spiroplasma vive all'interno dell'emolinfa degli insetti e viene trasmesso dalla madre alla progenie.
La caratteristica che ha reso Spiroplasma un protagonista dell'entomologia evolutiva è però un fenomeno ancora più radicale: alcune popolazioni batteriche sono capaci di provocare la morte selettiva degli embrioni maschili prodotti da femmine infette.
Il risultato è una progenie fortemente sbilanciata verso le femmine.
A prima vista potrebbe sembrare una malattia particolarmente selettiva. In realtà il fenomeno rappresenta qualcosa di molto più interessante. La morte dei maschi non costituisce semplicemente un effetto collaterale dell'infezione. In determinati sistemi rappresenta una manipolazione riproduttiva che può aumentare la trasmissione del simbionte attraverso le figlie della femmina infetta.
Il batterio, quindi, non deve necessariamente rendere l'ospite più sano.
Deve riuscire a passare alla generazione successiva.
È questa prospettiva evolutiva a trasformare Spiroplasma da semplice microrganismo in uno degli esempi più affascinanti di conflitto biologico tra livelli differenti di selezione.
Un batterio senza parete
Una delle caratteristiche fondamentali di Spiroplasma è l'assenza della parete cellulare batterica.
Questa caratteristica distingue i membri del genere da moltissimi altri batteri e contribuisce alla loro particolare flessibilità strutturale. La cellula non possiede una rigida parete di peptidoglicano che ne definisca in maniera stabile la forma. La membrana plasmatica diventa quindi la principale struttura che delimita il batterio dall'ambiente circostante.
La conseguenza è una morfologia estremamente dinamica.
Spiroplasma può assumere forme filamentose, spiraliformi o più irregolari e possiede una motilità particolare. Alcune cellule sono estremamente sottili e possono muoversi attraverso ambienti biologici nei quali un batterio dotato di parete rigida incontrerebbe limitazioni differenti.
Questa caratteristica è particolarmente interessante quando il batterio vive nell'organismo dell'insetto.
L'ambiente interno dell'ospite non è uno spazio vuoto. È costituito da tessuti, cellule, membrane, proteine, molecole immunitarie e barriere anatomiche. Un simbionte che deve raggiungere differenti compartimenti dell'organismo deve possedere caratteristiche fisiche e fisiologiche compatibili con una vita estremamente dinamica.
Spiroplasma e l'emolinfa
In alcune associazioni con gli insetti, Spiroplasma vive nell'emolinfa.
L'emolinfa rappresenta il fluido circolatorio degli artropodi. Non è equivalente al sangue dei vertebrati, ma svolge numerose funzioni fondamentali: trasporto di nutrienti, distribuzione di metaboliti, segnalazione, difesa immunitaria e mantenimento dell'omeostasi.
Vivere nell'emolinfa offre al batterio una via di distribuzione estremamente efficace.
Un microrganismo che riesce a moltiplicarsi nel sistema circolatorio dell'insetto può raggiungere differenti regioni dell'organismo senza dover necessariamente attraversare una serie di barriere anatomiche indipendenti.
Per un simbionte trasmesso verticalmente, questa capacità può essere fondamentale.
Il batterio deve infatti raggiungere le strutture riproduttive della femmina e, soprattutto, la linea germinale.
La linea germinale
La linea germinale rappresenta il vero obiettivo evolutivo di un simbionte maternamente trasmesso.
Una cellula batterica presente in un tessuto somatico può replicarsi e aumentare la propria popolazione all'interno dell'ospite, ma la sua permanenza termina con la morte dell'insetto se non possiede una via di trasmissione.
La situazione cambia completamente quando il batterio riesce a entrare nelle uova.
L'ovocita rappresenta una sorta di ponte biologico tra due generazioni.
La femmina infetta contiene Spiroplasma.
Una parte dei suoi ovociti contiene Spiroplasma.
Le figlie che nasceranno da quegli ovociti possono quindi diventare nuove femmine infette.
La trasmissione materna crea così una linea di continuità nella quale il batterio può attraversare generazioni successive senza bisogno di essere trasferito direttamente da un insetto adulto a un altro.
Perché i maschi sono un vicolo evolutivo
Qui emerge il problema fondamentale.
Se Spiroplasma viene trasmesso principalmente attraverso le femmine, il maschio infetto rappresenta una destinazione evolutivamente poco utile per il simbionte.
Il maschio può sopravvivere, crescere, alimentarsi e riprodursi, ma il suo Spiroplasma non passa normalmente attraverso lo spermatozoo alla generazione successiva nella stessa maniera in cui il batterio passa attraverso il citoplasma dell'ovocita.
Dal punto di vista del simbionte, quindi, una figlia infetta è una potenziale nuova linea di trasmissione.
Un figlio infetto è invece una strada molto più limitata.
Questa asimmetria costituisce la base teorica del male-killing.
Se un batterio riesce a eliminare selettivamente i maschi e contemporaneamente lascia vive le femmine, la proporzione di discendenti capaci di trasmetterlo può aumentare.
Il batterio non "ragiona" in questi termini.
Non possiede intenzionalità.
La selezione naturale favorisce semplicemente le varianti che, attraverso differenze ereditarie, riescono a lasciare più copie nelle generazioni successive.
Il male-killing
Il termine male-killing indica la morte selettiva degli individui maschili provocata da un simbionte o da un altro agente biologico.
Nel caso degli Spiroplasma che possiedono questa capacità, la morte avviene generalmente durante lo sviluppo della progenie di una femmina infetta.
Una femmina può quindi produrre uova che contengono sia embrioni maschili sia embrioni femminili.
Gli embrioni femminili possono svilupparsi normalmente.
Quelli maschili, invece, vengono colpiti da una patologia specifica e possono morire durante lo sviluppo.
La progenie risultante è quindi fortemente femmina-biased.
Il fenomeno è particolarmente spettacolare perché non richiede che il batterio modifichi necessariamente il genoma dell'insetto.
Il sesso genetico dell'embrione rimane quello determinato dal sistema riproduttivo dell'ospite.
È il batterio a interferire successivamente con lo sviluppo.
Il caso di Drosophila
Uno dei sistemi più studiati è quello che coinvolge Drosophila melanogaster e Spiroplasma poulsonii.
Questo modello ha avuto un'importanza enorme nella ricerca perché permette di osservare contemporaneamente microbiologia, genetica, sviluppo embrionale, immunologia ed evoluzione.
Drosophila melanogaster è uno degli organismi modello più importanti della biologia. Il suo sviluppo è stato studiato in maniera estremamente approfondita e numerosi geni e processi cellulari sono conosciuti con grande dettaglio.
L'associazione con Spiroplasma permette quindi di introdurre una variabile biologica esterna in un sistema già estremamente caratterizzato.
Il risultato è una situazione quasi ideale per studiare come un simbionte possa interferire con una macchina dello sviluppo altamente regolata.
Non è semplicemente una tossina generica
Uno degli aspetti più importanti emersi dallo studio di S. poulsonii è che il male-killing non sembra essere il risultato di una tossicità indiscriminata.
Il batterio deve colpire gli embrioni maschili in maniera selettiva.
Questo significa che deve esistere una vulnerabilità biologica specifica del sesso maschile.
La ricerca ha portato all'identificazione di una proteina batterica chiamata Spaid, associata al fenotipo di male-killing in S. poulsonii.
L'espressione di Spaid in Drosophila è stata sufficiente a ricreare aspetti fondamentali del fenotipo, compresa la morte selettiva dei maschi e gravi alterazioni dello sviluppo neuronale. Il meccanismo è stato collegato all'apparato di compensazione del dosaggio del cromosoma X maschile.
Questa scoperta è stata un punto di svolta.
Per decenni era stato osservato il fenomeno biologico.
Finalmente era possibile collegarlo a un fattore molecolare specifico.
Spaid
Spaid è una proteina batterica straordinariamente interessante perché possiede caratteristiche che le permettono di interagire con la biologia cellulare dell'ospite.
La proteina contiene domini che possono contribuire alla sua localizzazione cellulare e alla sua attività molecolare.
Tra questi sono state identificate ripetizioni di tipo ankyrin e un dominio con attività deubiquitinasi.
Questi elementi suggeriscono che Spaid non agisca semplicemente come una tossina che distrugge casualmente le cellule.
Il suo comportamento è più sofisticato.
Interagisce con processi cellulari dell'ospite.
Ed è proprio questa interazione a permettere al batterio di trasformare una caratteristica molecolare dell'embrione maschile in un punto di vulnerabilità.
La compensazione del dosaggio
Per comprendere il male-killing prodotto da S. poulsonii bisogna entrare nella genetica del sesso di Drosophila.
Le femmine possiedono due cromosomi X.
I maschi ne possiedono uno solo.
Questa differenza genera un problema fondamentale.
Se i geni presenti sul cromosoma X venissero espressi semplicemente in base al numero di copie cromosomiche, le cellule maschili produrrebbero una quantità inferiore di molti prodotti genici rispetto alle cellule femminili.
L'organismo deve quindi compensare questa differenza.
Nei maschi di Drosophila, il sistema di compensazione del dosaggio aumenta l'espressione dei geni legati al cromosoma X.
In questo modo una singola copia può raggiungere livelli di espressione compatibili con la presenza di due cromosomi X nelle femmine.
È un sistema estremamente sofisticato.
Ed è proprio questo sistema che Spaid sembra sfruttare.
Colpire il sistema di compensazione
Il male-killing di S. poulsonii può quindi essere interpretato come un esempio di vulnerabilità evolutiva.
Il maschio possiede una particolare macchina molecolare necessaria per compensare la presenza di un solo cromosoma X.
La femmina non utilizza lo stesso sistema nello stesso modo.
Se un fattore batterico interferisce con questa macchina, il danno può risultare fortemente sessualmente specifico.
È una strategia elegantissima dal punto di vista evolutivo.
Il batterio non deve riconoscere necessariamente il sesso dell'embrione attraverso un sensore dedicato.
Può sfruttare una differenza fisiologica già presente nell'ospite.
Il sesso diventa così una vulnerabilità molecolare.
Dalla proteina alla morte cellulare
L'interferenza con la compensazione del dosaggio produce una cascata di conseguenze.
Le cellule dell'embrione maschile iniziano a svilupparsi in condizioni molecolari anomale.
L'espressione genica viene perturbata.
I tessuti più sensibili iniziano a manifestare difetti.
La risposta cellulare può coinvolgere vie di morte programmata.
L'apoptosi diventa quindi una componente importante della patologia.
Studi cellulari hanno mostrato un coinvolgimento della via apoptotica nell'eliminazione degli embrioni maschili infetti, con particolare evidenza di alterazioni nei tessuti epiteliali e nello sviluppo del sistema nervoso.
Il risultato finale è la morte dell'embrione.
Non si tratta quindi semplicemente di "avvelenamento".
È una forma di manipolazione molecolare dello sviluppo.
Il sistema nervoso come bersaglio
Una delle caratteristiche più sorprendenti del male-killing da Spiroplasma è la presenza di difetti neurologici nei maschi infetti.
Il sistema nervoso embrionale è estremamente sensibile alle alterazioni dello sviluppo.
Durante le prime fasi della vita dell'insetto, cellule progenitrici devono proliferare, migrare, differenziarsi e stabilire connessioni precise.
Qualsiasi alterazione significativa di questi processi può avere conseguenze devastanti.
Nel caso di S. poulsonii, le anomalie neurologiche sono state associate al fenotipo di male-killing.
Il batterio, quindi, non si limita a ridurre la vitalità generale dell'embrione.
Interferisce con processi fondamentali della costruzione dell'organismo.
Perché le femmine sopravvivono?
Questa è una delle domande più importanti.
Se Spaid è presente nell'organismo, perché le femmine non vengono eliminate allo stesso modo?
La risposta risiede nella differenza tra i sistemi cromosomici maschile e femminile.
Il meccanismo molecolare sfruttato dal batterio è associato alla particolare configurazione del cromosoma X maschile e alla compensazione del dosaggio.
La femmina possiede due cromosomi X e non deve risolvere lo stesso problema attraverso la stessa configurazione molecolare.
Il batterio trova quindi un bersaglio presente in maniera funzionalmente differente nei due sessi.
Questa è una delle caratteristiche che rende il male-killing così affascinante.
La selettività non è necessariamente basata su un riconoscimento comportamentale.
È incorporata nella fisiologia dello sviluppo.
Il vantaggio per Spiroplasma
La domanda evolutiva successiva è inevitabile.
Perché dovrebbe essere vantaggioso uccidere metà della progenie?
In determinate condizioni la risposta è semplice: perché i maschi non sono necessari alla trasmissione materna del simbionte, mentre le femmine possono diventare nuove ospiti riproduttive.
Ma questo vantaggio non è automatico.
La morte dei maschi riduce infatti il numero complessivo di discendenti.
Se l'eliminazione maschile non producesse alcun beneficio compensativo, il fenomeno potrebbe persino danneggiare la trasmissione del simbionte.
Deve quindi esistere un vantaggio relativo per le femmine infette.
La redistribuzione delle risorse
Una delle principali ipotesi evolutive è la redistribuzione delle risorse.
Se un embrione maschile muore, le risorse che avrebbe utilizzato durante lo sviluppo possono diventare disponibili per le sorelle sopravvissute.
Questo può essere particolarmente importante quando i fratelli competono per risorse limitate.
La morte precoce di un maschio può quindi aumentare la quantità di risorse disponibile per le femmine.
La conseguenza è una maggiore sopravvivenza o una maggiore capacità riproduttiva delle figlie.
In questo modo il costo apparente del male-killing può trasformarsi in un vantaggio per la linea materna infetta.
La competizione tra fratelli
La competizione tra fratelli è particolarmente importante quando la progenie condivide risorse.
Immaginiamo una femmina che produce dieci uova.
Se tutte sviluppano normalmente, alcune saranno maschi e altre femmine.
Se invece i maschi vengono eliminati molto presto, le risorse disponibili possono essere concentrate sulle femmine.
La femmina adulta risultante potrebbe crescere più rapidamente, raggiungere dimensioni maggiori oppure produrre più uova.
La selezione naturale può quindi favorire un simbionte che aumenta il numero di figlie fertili anche riducendo il numero totale di figli.
È una logica controintuitiva se si guarda all'organismo.
Diventa molto più comprensibile se si guarda alla trasmissione del simbionte.
Non tutti i male-killing sono uguali
È fondamentale evitare una semplificazione.
Non esiste un unico meccanismo di male-killing valido per tutti gli Spiroplasma.
Sono stati identificati sistemi di male-killing in gruppi filogeneticamente differenti del genere, compresi il gruppo Citri-Poulsonii e il gruppo Ixodetis.
Nel caso di S. poulsonii, Spaid è fortemente associata al male-killing.
In altri sistemi, invece, il gene spaid può essere assente e il fenomeno può essere prodotto attraverso meccanismi differenti. Studi su S. ixodetis hanno evidenziato differenze nella distribuzione del batterio, nel genoma e nei possibili effettori coinvolti.
Questo significa che il male-killing potrebbe essere evoluto più volte indipendentemente.
Evoluzione convergente
La capacità di uccidere i maschi sembra essere un esempio di evoluzione convergente.
Batteri differenti possono arrivare a una soluzione funzionalmente simile: aumentare la rappresentanza delle femmine attraverso cui la trasmissione materna può continuare.
Non significa che possiedano gli stessi geni.
Significa che la pressione selettiva può favorire lo stesso risultato finale attraverso meccanismi molecolari differenti.
Questo è un concetto centrale nell'evoluzione.
La selezione naturale non deve produrre una soluzione identica.
Può produrre soluzioni differenti allo stesso problema.
Spiroplasma e Wolbachia
Il confronto con Wolbachia è inevitabile.
Entrambi possono essere trasmessi maternalmente.
Entrambi possono manipolare la riproduzione degli artropodi.
Entrambi possono produrre male-killing.
Entrambi possono alterare la sex ratio.
Ma non sono lo stesso tipo di batterio e non devono necessariamente utilizzare gli stessi meccanismi.
Wolbachia appartiene alle Alphaproteobacteria.
Spiroplasma appartiene ai Mollicutes.
La loro storia evolutiva è profondamente diversa.
Il fatto che abbiano sviluppato strategie riproduttive simili è quindi particolarmente significativo.
Un confronto tra due strategie evolutive
Wolbachia possiede una gamma estremamente ampia di manipolazioni riproduttive: incompatibilità citoplasmatica, femminizzazione, partenogenesi e male-killing.
Spiroplasma è particolarmente noto per il male-killing, ma il genere comprende anche simbionti con funzioni differenti.
La comparazione permette di osservare come diversi batteri possano sfruttare la stessa caratteristica fondamentale dell'ospite: la trasmissione materna.
In entrambi i casi la femmina rappresenta il canale evolutivamente privilegiato.
Il simbionte deve quindi aumentare il successo delle linee femminili infette oppure penalizzare quelle non infette.
Spiroplasma come simbionte difensivo
La storia di Spiroplasma non è però esclusivamente una storia di manipolazione sessuale.
Alcuni Spiroplasma associati agli insetti possono fornire protezione contro antagonisti biologici.
In Drosophila, alcuni simbionti possono contribuire alla resistenza contro parassitoidi e nematodi.
Questa caratteristica è particolarmente interessante perché trasforma il rapporto da semplice parassitismo riproduttivo a possibile mutualismo difensivo.
Il batterio può quindi avere due effetti apparentemente differenti.
Da una parte manipola la riproduzione.
Dall'altra protegge l'ospite.
Questi fenomeni possono coesistere.
Un simbionte può essere contemporaneamente parassita e mutualista?
Sì.
La distinzione dipende dal tratto considerato.
Spiroplasma può ottenere un vantaggio dalla morte dei maschi.
Contemporaneamente può aumentare la sopravvivenza delle femmine proteggendole da un antagonista.
Dal punto di vista della femmina, quindi, la presenza del batterio può essere contemporaneamente costosa e vantaggiosa.
Il rapporto complessivo dipende dal bilancio tra questi effetti.
È un esempio perfetto del fatto che "simbiosi" non significa automaticamente mutualismo.
Le tossine di Spiroplasma
Una delle aree più interessanti della ricerca riguarda le molecole prodotte dagli Spiroplasma.
Alcuni simbionti possiedono fattori capaci di influenzare il sistema immunitario dell'ospite, la fisiologia cellulare o gli organismi antagonisti.
Queste molecole possono avere funzioni differenti.
Una tossina può proteggere l'insetto da un nematode.
Un'altra può contribuire al male-killing.
Un'altra ancora può avere un ruolo nell'interazione con il sistema immunitario.
Il termine "tossina" non deve quindi essere interpretato automaticamente come sinonimo di patogenicità generale.
La funzione dipende dal bersaglio.
La chimica dell'emolinfa
Nel caso degli Spiroplasma che vivono nell'emolinfa, il rapporto con il metabolismo dell'ospite diventa particolarmente interessante.
L'emolinfa contiene nutrienti, lipidi, proteine e altri metaboliti.
Il batterio deve procurarsi ciò che gli serve per crescere.
L'assenza della parete cellulare e la relativa semplicità metabolica di alcuni Mollicutes sono associate a una forte dipendenza dalle risorse disponibili nell'ambiente.
Questa dipendenza contribuisce a spiegare perché la relazione con l'ospite possa essere così stretta.
Il batterio non è semplicemente un organismo che "vive dentro".
È metabolicamente integrato nell'ambiente dell'insetto.
La densità batterica
Un elemento cruciale è la quantità di Spiroplasma presente nell'ospite.
La densità batterica può cambiare durante lo sviluppo e in funzione delle condizioni ambientali.
Una quantità sufficiente di batteri può essere necessaria per produrre determinati fenotipi.
Se la densità scende sotto una determinata soglia, l'effetto può indebolirsi.
Questo introduce una relazione tra ecologia, fisiologia e genetica.
Il fenotipo osservato non dipende esclusivamente dalla presenza o assenza del batterio.
Dipende anche dalla sua abbondanza.
Temperatura e ambiente
L'ambiente può modificare il rapporto tra Spiroplasma e insetto.
La temperatura influenza la fisiologia sia dell'ospite sia del simbionte.
Può cambiare il tasso di replicazione batterica, la risposta immunitaria dell'insetto, la trasmissione materna e l'intensità dei fenotipi associati.
Questo significa che un'associazione osservata in laboratorio a una determinata temperatura non deve necessariamente comportarsi nello stesso modo in natura.
L'ecologia reale è molto più variabile.
La trasmissione imperfetta
La trasmissione materna non è necessariamente perfetta.
Una femmina infetta può produrre alcune uova che non ricevono una quantità sufficiente di simbionti.
Questo fenomeno rappresenta una perdita per il batterio.
Per mantenere una presenza stabile nella popolazione, Spiroplasma deve compensare queste perdite attraverso vantaggi riproduttivi.
Il male-killing può essere uno dei meccanismi.
La protezione dell'ospite può essere un altro.
La combinazione di diversi effetti può determinare la capacità del simbionte di persistere.
La frequenza dell'infezione
La prevalenza di Spiroplasma in una popolazione può cambiare nel tempo.
Se il batterio produce un forte vantaggio, la sua frequenza può aumentare.
Se i costi superano i benefici, può diminuire.
Se l'ambiente cambia, il bilancio può invertirsi.
Una popolazione può quindi attraversare fasi di alta e bassa prevalenza.
Questo rende Spiroplasma un vero fenomeno di genetica delle popolazioni.
La matematica del simbionte
Possiamo immaginare una popolazione composta da femmine infette e non infette.
Le femmine infette producono una certa quantità di figlie.
Le femmine non infette producono maschi e femmine in proporzioni differenti.
Se le femmine infette producono una percentuale molto maggiore di figlie, la frequenza del simbionte può aumentare.
Ma se la trasmissione è imperfetta o l'infezione riduce fortemente la fertilità, il vantaggio può scomparire.
La dinamica del simbionte dipende quindi da un equilibrio matematico tra trasmissione, fertilità, sopravvivenza e manipolazione della sex ratio.
Il conflitto tra il gene dell'insetto e il simbionte
L'evoluzione di Spiroplasma crea un conflitto particolarmente interessante.
Il genoma dell'insetto non "vuole" necessariamente perdere i propri maschi.
Il simbionte invece può trarre beneficio dalla loro eliminazione.
La femmina infetta si trova quindi al centro di due interessi evolutivi.
Il proprio genoma beneficia normalmente della produzione di entrambi i sessi.
Il simbionte può beneficiare della produzione di più femmine.
Questa situazione è un esempio di conflitto genetico tra entità biologiche differenti.
La selezione a livello del simbionte
Il concetto di gene egoista può essere applicato in maniera particolarmente efficace.
Spiroplasma non deve essere considerato un organismo "cattivo".
Non possiede intenzioni.
La sua evoluzione segue semplicemente le conseguenze della trasmissione.
Una variante batterica che aumenta la propria presenza nelle uova ha un vantaggio.
Una variante che non riesce a raggiungere la linea germinale viene progressivamente persa.
Una variante capace di aumentare la produzione di femmine infette può diffondersi.
La selezione naturale agisce sulle differenze nella trasmissione.
La popolazione come teatro della selezione
Il singolo insetto è soltanto una parte della storia.
Il fenomeno diventa realmente comprensibile osservando intere popolazioni.
Se il 10% delle femmine è infetto, il male-killing potrebbe modificare gradualmente la proporzione dei sessi.
Se la frequenza raggiunge il 50%, l'effetto sulla popolazione può diventare molto più evidente.
Se l'infezione diventa quasi universale, invece, il vantaggio relativo del simbionte può diminuire perché quasi tutte le femmine sono ormai infette.
La dinamica può quindi essere non lineare.
La resistenza dell'ospite
Gli insetti non sono organismi passivi.
L'evoluzione può favorire mutazioni che riducono gli effetti negativi del simbionte.
Se una popolazione rimane infetta per molte generazioni, possono comparire varianti dell'ospite capaci di tollerare meglio Spiroplasma.
Il batterio, a sua volta, può evolvere.
Si crea quindi una corsa evolutiva.
L'ospite cerca di limitare il danno.
Il simbionte cerca di mantenere la trasmissione.
Questa dinamica può produrre associazioni sempre più sofisticate.
L'evoluzione della tolleranza
Una soluzione particolarmente interessante per l'ospite non consiste necessariamente nell'eliminare il batterio.
Eliminare completamente Spiroplasma potrebbe essere difficile.
Può essere più vantaggioso sviluppare tolleranza.
L'insetto permette al batterio di vivere ma riduce il danno.
Questo tipo di strategia può trasformare gradualmente un rapporto parassitario in un rapporto più equilibrato.
La simbiosi può quindi essere vista come un processo dinamico.
Spiroplasma e parassitoidi
Il rapporto tra Spiroplasma e parassitoidi è particolarmente affascinante.
Un parassitoide può deporre le proprie uova nell'insetto e utilizzare l'ospite per completare lo sviluppo della progenie.
Se Spiroplasma protegge l'insetto dal parassitoide, il batterio aumenta indirettamente la sopravvivenza della propria casa biologica.
Il fenomeno produce una catena evolutiva a più livelli.
Il parassitoide seleziona l'insetto.
L'insetto seleziona il simbionte.
Il simbionte seleziona la propria capacità di difesa.
Il risultato è una vera corsa agli armamenti.
La guerra invisibile
Immaginare un insetto infetto da Spiroplasma significa immaginare un ecosistema microscopico nel quale possono interagire numerosi organismi.
L'insetto possiede il proprio sistema immunitario.
Spiroplasma vive al suo interno.
Un parassitoide può cercare di sfruttare l'insetto.
Il batterio può produrre molecole difensive.
Il parassitoide può evolvere contromisure.
Il tutto avviene all'interno di un organismo lungo pochi millimetri.
È una guerra evolutiva che non è visibile a occhio nudo.
Spiroplasma come sistema modello
La combinazione tra facilità di manipolazione dell'ospite, disponibilità di strumenti genetici e fenotipi spettacolari ha reso Drosophila–Spiroplasma un sistema modello per studiare le interazioni ospite-simbionte.
Il ricercatore può osservare la trasmissione, modificare geneticamente il batterio o l'ospite, analizzare gli embrioni e misurare gli effetti sulla fitness.
Questo permette di collegare direttamente il livello molecolare a quello evolutivo.
Una proteina batterica può essere collegata a un processo cellulare.
Quel processo cellulare può provocare la morte di un embrione.
La morte dell'embrione modifica la sex ratio.
La sex ratio modifica la fitness della femmina.
La fitness modifica la frequenza del simbionte nella popolazione.
È una catena causale che attraversa quasi tutti i livelli della biologia.
Un batterio che modifica il sesso senza modificare il sesso
Questo paradosso descrive perfettamente il male-killing.
Spiroplasma non deve necessariamente trasformare geneticamente un maschio in una femmina.
L'embrione rimane maschio.
Ma il suo programma di sviluppo viene alterato fino a impedirgli di raggiungere lo stadio adulto.
Il risultato visibile è una popolazione con molte più femmine.
Quindi il batterio non modifica necessariamente la determinazione del sesso.
Modifica la probabilità che un determinato sesso sopravviva.
È una distinzione concettuale molto importante.
Determinazione del sesso e sopravvivenza sessuale
La determinazione del sesso avviene attraverso sistemi genetici specifici.
Il male-killing agisce invece sulla sopravvivenza degli individui già determinati.
Questi due processi possono essere separati.
Un organismo può essere geneticamente maschio ma morire prima di sviluppare il fenotipo adulto.
La popolazione risultante sarà quindi femmina-biased senza che il rapporto genetico iniziale tra maschi e femmine sia necessariamente alterato.
Questa distinzione permette di comprendere perché il fenomeno sia tanto interessante dal punto di vista evolutivo.
Il ruolo dell'apoptosi
La morte cellulare programmata è una componente fondamentale dello sviluppo animale.
Le cellule possono essere eliminate quando diventano inutili, danneggiate o potenzialmente pericolose.
L'apoptosi permette quindi di modellare i tessuti durante lo sviluppo.
Spiroplasma sfrutta indirettamente questo sistema.
L'interferenza con processi cellulari critici può portare all'attivazione della morte programmata.
Il batterio non deve necessariamente distruggere direttamente ogni cellula.
Può alterare il sistema fino a spingere la cellula stessa verso la propria eliminazione.
Questo rappresenta un principio generale molto importante nella patologia e nella manipolazione cellulare.
Il paradosso della tossina utile
Dal punto di vista dell'insetto, una proteina come Spaid è dannosa.
Dal punto di vista del batterio, può essere vantaggiosa.
Questa differenza di prospettiva è fondamentale.
Una molecola non possiede un valore biologico assoluto.
Il suo significato dipende dall'organismo e dal livello evolutivo considerato.
Spaid può essere letale per l'embrione maschile ma utile alla trasmissione del simbionte.
Una tossina può quindi diventare uno strumento evolutivo.
Spiroplasma e biologia molecolare
Lo studio di questi batteri ha inoltre contribuito alla comprensione delle interazioni tra proteine batteriche e proteine dell'ospite.
I simbionti intracellulari devono continuamente interagire con le cellule che li ospitano.
Devono evitare o modulare le risposte immunitarie.
Devono acquisire nutrienti.
Devono replicarsi.
Devono raggiungere determinati tessuti.
Devono essere trasmessi.
Ogni passaggio richiede interazioni molecolari.
Il risultato è un'enorme rete di segnali.
La plasticità del simbionte
Spiroplasma dimostra anche quanto possa essere flessibile il comportamento dei simbionti.
All'interno dello stesso genere possono esistere batteri con fenotipi molto diversi.
Alcuni possono essere associati a piante.
Altri a insetti.
Alcuni possono essere patogeni.
Altri possono essere mutualisti.
Altri ancora possono manipolare la riproduzione.
Questa diversità rende difficile descrivere il genere attraverso una singola definizione funzionale.
Il genoma ridotto
Come altri Mollicutes, gli Spiroplasma possiedono genomi relativamente compatti rispetto a molti batteri a vita libera.
La riduzione genomica è spesso associata a una maggiore dipendenza dall'ospite.
Quando un batterio vive in un ambiente relativamente stabile e ricco di metaboliti, può perdere alcune capacità metaboliche che sarebbero necessarie a un organismo indipendente.
Il risultato è una progressiva specializzazione.
La simbiosi diventa quindi una forma di dipendenza evolutiva.
Un equilibrio delicato
Un simbionte non può necessariamente replicarsi senza limiti.
Se la sua crescita è eccessiva, può danneggiare l'ospite.
Se danneggia troppo l'ospite, può ridurre la trasmissione.
Se invece la densità è troppo bassa, può non ottenere il vantaggio necessario.
Esiste quindi un equilibrio tra replicazione e tollerabilità.
Questo equilibrio è una delle caratteristiche fondamentali delle simbiosi intracellulari.
La trasmissione come centro dell'evoluzione
Per comprendere Spiroplasma bisogna sempre tornare alla trasmissione.
Tutto ruota intorno a essa.
La colonizzazione dell'emolinfa serve alla distribuzione.
La colonizzazione della linea germinale serve alla trasmissione.
Il male-killing favorisce le figlie.
Le tossine possono proteggere l'ospite.
La riduzione della patogenicità può aumentare la sopravvivenza.
La regolazione della densità può mantenere il sistema stabile.
Ogni caratteristica deve essere interpretata in rapporto alla possibilità di passare alla generazione successiva.
Il maschio come destino evolutivo perdente
La situazione del maschio infetto è particolarmente interessante.
Se Spiroplasma viene trasmesso maternamente, il batterio presente nel maschio non rappresenta una linea efficiente di trasmissione.
Questo crea una pressione selettiva particolare.
Il maschio diventa una sorta di "ramo morto" del simbionte.
La femmina, invece, è un ponte verso la generazione successiva.
Da questa asimmetria emerge il male-killing.
La biologia del sesso dell'insetto diventa quindi parte integrante della biologia del batterio.
Quando il parassita diventa parte dell'eredità
Una delle conseguenze più profonde di queste simbiosi è che l'insetto può ereditare qualcosa che non appartiene al proprio genoma nucleare.
Una femmina trasmette il DNA cromosomico alle figlie.
Ma contemporaneamente trasmette anche Spiroplasma.
Le figlie possono quindi ricevere due sistemi biologici ereditari differenti.
Uno è basato sul DNA.
L'altro è basato sulla presenza del simbionte.
Questo fenomeno amplia enormemente il concetto tradizionale di ereditarietà.
Eredità genetica ed eredità citoplasmatica
Il DNA nucleare segue regole di segregazione ben definite.
Il citoplasma dell'ovocita segue una logica differente.
I mitocondri rappresentano un altro esempio di eredità citoplasmatica.
Spiroplasma si inserisce nello stesso grande quadro concettuale.
L'ovocita non trasporta soltanto il genoma.
Trasporta un intero ambiente cellulare.
All'interno di questo ambiente possono essere presenti organelli e microrganismi capaci di influenzare la biologia della progenie.
Il microbioma come carattere ereditabile
La presenza di Spiroplasma mostra quindi che una parte del fenotipo dell'insetto può dipendere da un componente ereditato esternamente al genoma.
La predisposizione al male-killing, la protezione contro alcuni antagonisti e altri fenotipi possono essere associati alla presenza del simbionte.
In questo senso, il microbioma può diventare una componente ereditaria del fenotipo.
È una delle ragioni per cui la moderna entomologia presta sempre più attenzione alle comunità microbiche.
Un nuovo modo di definire l'individuo
Se un insetto contiene un simbionte che modifica la sua riproduzione, il suo metabolismo e la sua immunità, dove termina l'insetto e dove inizia il simbionte?
La domanda non è puramente filosofica.
Ha conseguenze concrete sull'evoluzione.
La fitness dell'insetto può essere diversa dalla fitness del batterio.
Il fenotipo dell'insieme può dipendere da entrambi.
Il sistema biologico reale non è quindi semplicemente l'insetto.
È l'insetto più il suo microbioma.
Spiroplasma rende questa realtà particolarmente evidente.
Il futuro dello studio di Spiroplasma
Le prossime frontiere riguardano soprattutto la comprensione dei meccanismi molecolari che collegano il batterio all'ospite.
Nel caso di S. poulsonii, Spaid ha fornito una spiegazione fondamentale del male-killing, ma il quadro completo dell'interazione comprende probabilmente molte altre componenti.
Come viene regolata l'espressione dei fattori batterici?
Come raggiungono le cellule bersaglio?
Come vengono trasportate le proteine?
Come reagisce l'ospite?
Come evolve la resistenza?
Come cambiano i fenotipi in ambienti differenti?
Queste domande collegano genetica, biologia cellulare, microbiologia ed ecologia evolutiva.
La possibilità di manipolare Spiroplasma
La ricerca sperimentale sta inoltre sviluppando strumenti sempre più sofisticati per manipolare alcuni simbionti.
La possibilità di modificare geneticamente un batterio intracellulare e seguirne il comportamento all'interno dell'ospite permette di passare dalla semplice correlazione alla dimostrazione causale.
Questo è uno dei grandi obiettivi della biologia dei simbionti.
Non basta osservare che un insetto infetto presenta un certo fenotipo.
Bisogna dimostrare quale componente del batterio lo produce.
Nel caso di Spaid, l'identificazione del fattore ha rappresentato proprio questo salto concettuale.
Dalla biologia fondamentale alle applicazioni
La manipolazione della riproduzione degli insetti ha naturalmente attirato l'interesse dell'entomologia applicata.
Se un microrganismo è capace di alterare drasticamente la sex ratio di una popolazione, in teoria può diventare uno strumento per modificare la dinamica di specie dannose.
Tuttavia, l'applicazione pratica richiede molta cautela.
Un simbionte introdotto artificialmente potrebbe comportarsi diversamente in natura.
Potrebbe trasferirsi a specie non bersaglio.
Potrebbe evolvere.
Potrebbe essere perso dalla popolazione.
Potrebbe produrre effetti ecologici inattesi.
La biologia dei simbionti non può quindi essere trasformata automaticamente in una tecnologia di controllo.
Il significato ecologico
Il male-killing può modificare la struttura della popolazione.
Una sex ratio fortemente femmina-biased può influenzare la disponibilità dei maschi, la competizione sessuale e la distribuzione degli accoppiamenti.
Può inoltre cambiare la densità della popolazione nel corso delle generazioni.
Se le femmine infette sono più numerose, aumenta la probabilità che il simbionte venga trasmesso.
La popolazione può quindi entrare in una nuova configurazione evolutiva.
Una cascata dal batterio all'ecosistema
Il processo può essere visualizzato come una cascata biologica.
Spiroplasma produce un fattore molecolare.
Il fattore modifica una funzione cellulare.
La cellula alterata muore.
L'embrione maschile muore.
La progenie diventa femmina-biased.
La popolazione cambia sex ratio.
La struttura riproduttiva cambia.
La frequenza del simbionte cambia.
Altri organismi possono rispondere alla nuova struttura della popolazione.
Un evento iniziato all'interno di una singola cellula può quindi avere conseguenze ecologiche.
La lezione evolutiva
Spiroplasma dimostra che l'evoluzione non è una storia esclusivamente scritta nel genoma dell'ospite.
Esistono altri genomi.
Esistono simbionti.
Esistono elementi genetici mobili.
Esistono virus.
Esistono comunità microbiche.
Tutti questi componenti possono interagire.
L'evoluzione dell'insetto è quindi il risultato di una rete di interazioni.
Conclusione
Spiroplasma rappresenta uno degli esempi più straordinari di come un microrganismo possa diventare una forza evolutiva capace di modificare profondamente la biologia di un animale.
Il suo interesse non deriva semplicemente dalla capacità di vivere all'interno degli insetti.
Deriva dalla capacità di trasformare la propria presenza intracellulare in una strategia di trasmissione.
Il caso più spettacolare è il male-killing.
Una femmina infetta produce una progenie nella quale i maschi vengono selettivamente eliminati durante lo sviluppo. Le femmine sopravvissute diventano quindi i principali veicoli attraverso cui il simbionte può continuare la propria esistenza nelle generazioni successive.
Nel sistema Drosophila melanogaster–Spiroplasma poulsonii, la scoperta della proteina Spaid ha mostrato quanto possa essere sofisticato questo processo. Il batterio non agisce semplicemente come una tossina generica. Interferisce con una macchina fondamentale della biologia del maschio, la compensazione del dosaggio del cromosoma X, provocando una cascata di alterazioni cellulari che culmina nella morte dell'embrione.
Ma Spiroplasma non è soltanto un killer dei maschi.
Il genere comprende simbionti con funzioni differenti e associazioni molto diverse con gli ospiti. Alcuni sistemi mostrano capacità difensive contro parassitoidi o altri antagonisti, mentre altri presentano forme differenti di manipolazione riproduttiva. Studi comparativi hanno inoltre dimostrato che il male-killing può avere origini e meccanismi differenti in diversi gruppi di Spiroplasma.
Questa diversità rende Spiroplasma particolarmente prezioso per l'entomologia.
Il batterio permette di osservare direttamente il conflitto tra la fitness dell'ospite e quella del simbionte. Permette di seguire il passaggio dalla molecola alla cellula, dalla cellula all'embrione, dall'embrione alla sex ratio e dalla sex ratio alla dinamica della popolazione.
È un esempio quasi perfetto di biologia multilivello.
Una proteina batterica può alterare un processo cellulare.
Un processo cellulare può determinare la morte di un individuo.
La morte di determinati individui può cambiare la proporzione dei sessi.
La proporzione dei sessi può cambiare la fitness delle femmine.
La fitness delle femmine può determinare la diffusione del batterio.
E la diffusione del batterio può modificare l'evoluzione dell'intera popolazione.
Tutto questo nasce da un organismo microscopico privo persino di una parete cellulare.
Spiroplasma dimostra quindi una delle verità più profonde della biologia degli insetti: per comprendere veramente un animale non è sufficiente studiare l'animale.
Bisogna studiare anche ciò che vive dentro di lui.
E, in alcuni casi, bisogna chiedersi se quel microrganismo sia ancora semplicemente un ospite oppure se sia diventato una parte integrante dell'organismo che lo trasporta.
Nel caso di Spiroplasma, la risposta è sorprendentemente complessa.
Il batterio vive nell'insetto.
Ma attraverso la riproduzione dell'insetto, l'evoluzione del batterio può arrivare a modificare il destino dell'intera popolazione.