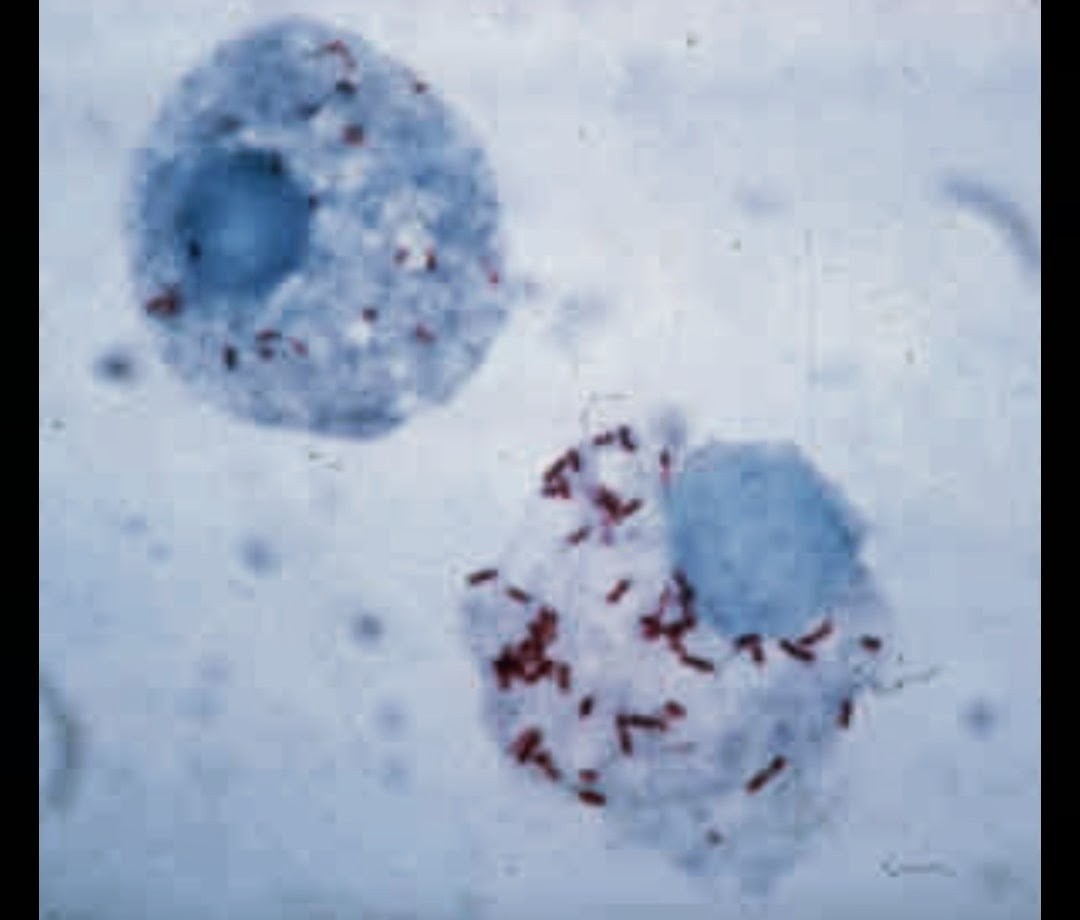
Rickettsia
Quando si pronuncia il nome Rickettsia, nella mente della maggior parte delle persone compare immediatamente l'immagine di un batterio patogeno associato alle zecche, ai pidocchi, alle pulci o ad altri artropodi vettori di malattie. Questa…
Rickettsia: l’endosimbionte degli artropodi tra simbiosi, manipolazione riproduttiva e trasmissione
Quando si pronuncia il nome Rickettsia, nella mente della maggior parte delle persone compare immediatamente l'immagine di un batterio patogeno associato alle zecche, ai pidocchi, alle pulci o ad altri artropodi vettori di malattie. Questa associazione è comprensibile, perché alcuni membri del genere Rickettsia sono responsabili di importanti patologie degli animali e dell'uomo.
Ma questa visione rappresenta soltanto una parte della storia.
Il genere Rickettsia è biologicamente molto più complesso di quanto suggerisca la sua fama medica. All'interno di questo gruppo esistono infatti numerose linee associate agli artropodi che non devono essere considerate semplicemente come agenti patogeni. Alcune vivono stabilmente all'interno delle cellule dell'ospite, possono essere trasmesse verticalmente dalla madre alla progenie e, in determinati casi, sono persino capaci di modificare profondamente la biologia riproduttiva dell'artropode.
Rickettsia diventa quindi un caso straordinario per comprendere quanto sia sottile il confine tra parassitismo, simbiosi e patogenicità.
Lo stesso grande gruppo batterico può contenere organismi associati alla malattia nell'uomo e organismi che hanno instaurato relazioni molto più intime con gli artropodi.
Questa dualità è uno degli aspetti più affascinanti della biologia di Rickettsia.
Il batterio non deve necessariamente essere visto come un semplice agente esterno che entra nell'ospite, provoca una malattia e viene eliminato. In molte associazioni con gli invertebrati il rapporto può essere molto più antico e complesso. Il batterio può diventare parte della biologia dell'ospite, essere trasferito da una generazione all'altra e, in alcuni casi, influenzare direttamente la riproduzione.
La situazione diventa ancora più interessante quando si considera l'evoluzione.
Un batterio trasmesso dalla madre attraverso il citoplasma delle cellule uovo possiede un interesse evolutivo particolare. La sua sopravvivenza dipende dalla capacità di raggiungere la generazione successiva. Se riesce a modificare la riproduzione dell'ospite in modo da favorire la propria trasmissione, la selezione naturale può favorire queste caratteristiche.
Rickettsia entra così nel grande mondo degli endosimbionti manipolatori, accanto a organismi come Wolbachia, Cardinium e Spiroplasma.
Ma con una caratteristica distintiva.
Rickettsia dimostra in maniera particolarmente evidente che la stessa relazione tra batterio e artropode può assumere forme completamente differenti.
Un genere associato da sempre alle malattie
La storia scientifica di Rickettsia è profondamente legata alla medicina.
Il genere è diventato famoso attraverso lo studio delle malattie trasmesse dagli artropodi, in particolare quelle associate a zecche e pidocchi.
Questo ha fatto sì che per molto tempo l'immagine di Rickettsia fosse quasi esclusivamente quella di un patogeno.
Dal punto di vista biologico, però, questa interpretazione è troppo restrittiva.
Gli studi molecolari hanno progressivamente mostrato che esistono numerose Rickettsia associate agli invertebrati che non presentano il comportamento tipico dei patogeni vertebrati.
Questi batteri possono vivere stabilmente all'interno dell'ospite e, invece di utilizzare l'artropode soltanto come vettore per raggiungere un vertebrato, possono avere nell'artropode stesso il proprio principale ambiente evolutivo.
Questa differenza è fondamentale.
Una Rickettsia patogena trasmessa da una zecca a un mammifero utilizza un sistema biologico completamente diverso da quello di una Rickettsia che vive stabilmente nelle cellule di un insetto e viene trasmessa dalla femmina alle proprie figlie.
In un caso l'artropode può rappresentare un vettore.
Nell'altro può essere il vero ospite evolutivo.
Il concetto di endosimbionte
Rickettsia è particolarmente adatta alla vita intracellulare.
Questa caratteristica è fondamentale per comprendere le sue associazioni con gli artropodi.
Un batterio extracellulare deve affrontare continuamente l'ambiente esterno, le variazioni di temperatura, la disponibilità di nutrienti e le difese dell'ospite.
Un batterio intracellulare vive invece in un ambiente completamente differente.
La cellula dell'ospite fornisce protezione, nutrienti e condizioni relativamente stabili.
Ma l'internalizzazione comporta anche una dipendenza.
Più il batterio si specializza nella vita intracellulare, più può diventare dipendente dalle funzioni dell'ospite.
Si crea quindi una relazione estremamente stretta.
Rickettsia sfrutta le cellule dell'artropode per vivere e moltiplicarsi.
L'artropode diventa contemporaneamente ambiente, fonte di risorse e mezzo di trasmissione.
La trasmissione verticale
Per un endosimbionte maternamente trasmesso, la trasmissione verticale rappresenta uno dei processi fondamentali.
Una femmina infetta può trasferire il batterio alle proprie uova.
Quando l'embrione si sviluppa, il batterio è già presente nel citoplasma.
Durante lo sviluppo può quindi colonizzare nuovi tessuti.
Questo sistema permette a Rickettsia di attraversare le generazioni senza dover necessariamente uscire dall'ospite.
È un meccanismo completamente diverso dalla trasmissione orizzontale tipica di molti patogeni.
In una trasmissione orizzontale il batterio deve passare da un individuo all'altro.
Nella trasmissione verticale, invece, la riproduzione dell'ospite diventa direttamente parte del ciclo biologico del simbionte.
La conseguenza evolutiva della trasmissione materna
Una volta compresa la trasmissione materna, diventa facile comprendere perché la riproduzione dell'ospite possa diventare un bersaglio evolutivo.
Il batterio beneficia della produzione di figlie infette.
Non beneficia necessariamente nello stesso modo della produzione di figli maschi.
Un maschio infetto può rappresentare un vicolo cieco per un simbionte che passa esclusivamente attraverso le femmine.
La selezione naturale può quindi favorire meccanismi capaci di aumentare la proporzione delle femmine infette.
Questo principio è condiviso da diversi endosimbionti degli artropodi.
Rickettsia dimostra che non è necessario appartenere a un unico gruppo batterico per sviluppare questo tipo di strategia.
Rickettsia e manipolazione riproduttiva
Alcune associazioni tra Rickettsia e artropodi sono state associate a fenomeni di manipolazione riproduttiva.
Questi possono assumere forme differenti.
In alcuni sistemi sono stati osservati effetti sulla fertilità.
In altri è stata descritta un'alterazione della proporzione tra maschi e femmine.
In determinati casi sono stati documentati fenomeni compatibili con l'uccisione selettiva dei maschi o con la partenogenesi.
Questa diversità è importante perché dimostra che Rickettsia non possiede un'unica strategia riproduttiva.
Il risultato dipende dalla specifica associazione tra ceppo batterico e ospite.
L'uccisione dei maschi
Il male killing è una delle forme più radicali di manipolazione riproduttiva.
Un simbionte trasmesso maternamente può ottenere un vantaggio se la morte dei maschi aumenta indirettamente il successo delle sorelle infette.
In alcune specie, infatti, i maschi possono competere con le femmine per risorse.
La loro eliminazione può quindi modificare la disponibilità di cibo e altri fattori ecologici.
Ma esiste anche una conseguenza genetica.
Se i maschi vengono eliminati durante lo sviluppo, le femmine infette possono rappresentare una quota crescente della popolazione.
Il simbionte viene quindi favorito perché il proprio veicolo principale diventa più abbondante.
La morte come strategia di trasmissione
A prima vista potrebbe sembrare paradossale.
Perché un simbionte dovrebbe uccidere un organismo che lo ospita?
La risposta sta nella scala evolutiva.
Il batterio non deve necessariamente massimizzare la sopravvivenza del singolo ospite.
Deve massimizzare la propria trasmissione.
Se la morte di un maschio aumenta il numero o il successo delle femmine infette, il costo biologico della morte può essere compensato dal vantaggio riproduttivo ottenuto dal simbionte.
Questo principio è uno dei concetti fondamentali della teoria della selezione a livello del simbionte.
La partenogenesi
Ancora più interessante è la possibilità che un endosimbionte favorisca la riproduzione senza fecondazione.
La partenogenesi permette alla femmina di produrre progenie senza dipendere dal maschio.
Per un simbionte trasmesso maternalmente, questo può rappresentare un enorme vantaggio.
La progenie femminile riceve il batterio dalla madre.
La trasmissione può quindi diventare estremamente efficiente.
Il simbionte non deve più affrontare il problema della presenza di maschi non infetti o della compatibilità sessuale.
La partenogenesi e la genetica dell'ospite
Il passaggio dalla riproduzione sessuale alla partenogenesi non è una modifica banale.
La fecondazione normalmente combina due patrimoni genetici.
La partenogenesi deve invece consentire all'ovocita di completare lo sviluppo in assenza dello spermatozoo.
Questo richiede modificazioni profonde della biologia cellulare.
Quando un batterio riesce a indurre o favorire questo processo, dimostra di possedere un'interazione straordinariamente sofisticata con il sistema riproduttivo dell'ospite.
La femminizzazione
La femminizzazione costituisce un'altra possibile strategia.
Un individuo che avrebbe sviluppato caratteristiche maschili viene indirizzato verso un fenotipo femminile.
Il risultato è particolarmente vantaggioso per un simbionte maternamente trasmesso.
Il maschio potenziale viene trasformato in un individuo capace di produrre uova e trasmettere il batterio.
In termini evolutivi, il simbionte recupera un ospite che altrimenti avrebbe rappresentato una destinazione meno utile.
La determinazione del sesso non è universale
Per comprendere questi fenomeni bisogna ricordare che negli artropodi non esiste un unico sistema di determinazione sessuale.
Esistono sistemi cromosomici differenti.
Esistono sistemi basati sull'aplodiploidia.
Esistono sistemi nei quali la determinazione del sesso dipende da reti genetiche complesse.
Questo significa che un simbionte può trovare differenti punti di ingresso.
Non esiste quindi una singola via molecolare universale che Rickettsia possa manipolare.
La strategia deve adattarsi alla biologia dello specifico ospite.
Il caso degli aracnidi
Gli aracnidi rappresentano un gruppo particolarmente interessante.
Rickettsia è stata trovata in diverse specie di ragni e altri aracnidi.
In questi organismi gli endosimbionti possono essere presenti contemporaneamente.
Wolbachia, Rickettsia e altri batteri possono coesistere nello stesso ospite.
Questo crea sistemi biologici estremamente complessi.
Il fenotipo riproduttivo osservato non deve necessariamente essere attribuito a un solo simbionte.
Può essere il risultato di interazioni tra più microrganismi.
Un esempio particolarmente interessante nei ragni
Una popolazione del ragno linyphiide Mermessus fradeorum ha fornito un esempio estremamente istruttivo.
In una linea materna erano presenti contemporaneamente Rickettsia e Wolbachia e la progenie mostrava una marcata prevalenza femminile. Quando gli endosimbionti venivano eliminati mediante trattamento antibiotico, la proporzione dei sessi tornava verso un rapporto equilibrato. Le osservazioni erano compatibili con un meccanismo di femminizzazione.
Questo caso è importante non soltanto per Rickettsia.
Dimostra che il microbioma riproduttivo può diventare una rete di interazioni.
Un singolo ospite può contenere più simbionti.
Questi simbionti possono influenzarsi reciprocamente.
E il risultato finale può essere molto diverso da quello prodotto da ciascun batterio considerato isolatamente.
La competizione tra simbionti
Immaginiamo una cellula uovo.
Per un simbionte maternamente trasmesso, quella cellula rappresenta una porta verso la generazione successiva.
Se due batteri competono per lo stesso spazio, la situazione diventa simile a una competizione ecologica in miniatura.
Rickettsia può competere con Wolbachia.
Cardinium può competere con altri endosimbionti.
La composizione microbica dell'ospite può quindi cambiare nel tempo.
Un ceppo che trasmette meglio può aumentare.
Uno che viene trasmesso peggio può diminuire.
La selezione agisce contemporaneamente sull'ospite e sui suoi simbionti.
La coinfezione
La coinfezione è uno dei fenomeni che rende la biologia degli endosimbionti particolarmente complessa.
Due individui della stessa specie possono avere microbiomi differenti.
Uno può possedere Rickettsia.
Un altro può possedere Wolbachia.
Un terzo può possederli entrambi.
Un quarto può non possedere nessuno dei due.
Le differenze possono produrre fenotipi riproduttivi completamente diversi.
Questo significa che l'appartenenza a una specie non determina necessariamente il comportamento riproduttivo dell'individuo.
Bisogna conoscere anche il suo stato endosimbiotico.
Il microbioma come secondo genoma
Questa osservazione porta a un concetto più ampio.
L'organismo non deve essere considerato soltanto come il prodotto del proprio genoma nucleare.
Il microbioma può rappresentare una componente biologica aggiuntiva.
Alcuni simbionti possiedono geni capaci di modificare metabolismo, immunità, sviluppo o riproduzione.
Il fenotipo dell'ospite emerge quindi dall'interazione tra il suo patrimonio genetico e quello dei microrganismi associati.
Rickettsia è uno degli esempi più evidenti di questa situazione.
Rickettsia nei vettori
Non tutte le Rickettsia associate agli artropodi sono manipolatrici della riproduzione.
Alcune sono importanti perché gli artropodi possono trasmetterle ai vertebrati.
Questo è particolarmente evidente nel mondo delle zecche.
Le zecche possono ospitare numerosi microrganismi.
Alcuni sono patogeni.
Altri sono endosimbionti.
Alcuni possono essere strettamente associati alla fisiologia dell'ospite.
Questa sovrapposizione rende difficile tracciare un confine netto tra simbionte e patogeno.
La zecca come ecosistema
Una zecca non è semplicemente un vettore passivo.
È un organismo con una fisiologia complessa.
Deve sopravvivere tra pasti ematici molto distanziati.
Deve gestire grandi quantità di sangue.
Deve regolare il metabolismo.
Deve svilupparsi e riprodursi.
Tutto questo avviene in presenza di una comunità microbica.
Gli endosimbionti possono contribuire a queste funzioni.
Alcuni studi indicano che i batteri intracellulari associati alle zecche possono contribuire allo sviluppo e al successo riproduttivo dell'ospite.
Questo introduce una distinzione fondamentale.
Non tutti gli endosimbionti sono parassiti riproduttivi.
Alcuni possono essere mutualisti o avere effetti positivi sull'ospite.
Dal parassitismo al mutualismo
Una relazione endosimbiotica può evolvere.
Un batterio che inizialmente manipola l'ospite potrebbe, nel corso dell'evoluzione, diventare meno dannoso.
Se l'ospite dipende progressivamente dal batterio, può emergere una relazione mutualistica.
Il contrario è ugualmente possibile.
Un simbionte apparentemente benefico può produrre costi in determinate condizioni.
La relazione non è quindi una categoria fissa.
È un processo evolutivo.
La dipendenza metabolica
La vita intracellulare impone costi.
Rickettsia può ottenere dall'ospite molecole che non è più in grado di sintetizzare autonomamente.
Questo è uno dei motivi per cui molti batteri intracellulari possiedono genomi relativamente ridotti.
Nel corso dell'evoluzione, alcuni geni possono andare perduti perché le loro funzioni vengono fornite dall'ospite.
Il risultato è una dipendenza crescente.
Il batterio diventa specializzato.
L'ospite diventa il suo ambiente.
Il genoma ridotto
Un genoma ridotto non significa necessariamente un organismo semplice.
Al contrario.
La riduzione genomica può essere il risultato di milioni di anni di adattamento a un ambiente cellulare stabile.
Se l'ospite fornisce determinate funzioni, il batterio non deve conservarne necessariamente i geni.
Questo processo può portare a una forte integrazione biologica.
La relazione tra Rickettsia e ospite diventa quindi una storia di perdita, conservazione e acquisizione di funzioni.
La cellula come ambiente ecologico
Per un microbiologo, la cellula dell'artropode può essere considerata un ecosistema.
Esistono nutrienti.
Esistono membrane.
Esistono compartimenti.
Esistono segnali.
Esistono sistemi immunitari intracellulari.
Esistono altri microrganismi.
Rickettsia deve trovare una nicchia all'interno di questo ambiente.
La capacità di colonizzare determinate cellule può quindi determinare il successo del batterio.
La linea germinale come nicchia privilegiata
Per un simbionte maternamente trasmesso, la linea germinale possiede un valore evolutivo particolare.
Raggiungere un ovocita significa raggiungere potenzialmente la generazione successiva.
La colonizzazione della linea germinale può quindi essere considerata una forma di investimento evolutivo.
Il batterio può sacrificare risorse per mantenersi in un tessuto che offre un'enorme opportunità di trasmissione.
Questo principio spiega perché molti endosimbionti siano associati ai tessuti riproduttivi.
La fedeltà della trasmissione
La trasmissione materna non deve essere perfetta per essere evolutivamente efficace.
Anche una trasmissione leggermente inferiore al cento per cento può mantenere un simbionte nella popolazione se esistono vantaggi sufficienti.
La dinamica dipende dal rapporto tra perdita dell'infezione e vantaggio riproduttivo.
Se le femmine infette producono significativamente più discendenti effettivamente infetti, Rickettsia può aumentare nella popolazione.
Se invece la trasmissione è troppo inefficiente, l'infezione può scomparire.
La frequenza dell'infezione
La prevalenza di Rickettsia può variare enormemente.
Può essere rara.
Può essere comune.
Può essere quasi fissata.
Può cambiare geograficamente.
Può cambiare stagionalmente.
Queste differenze possono dipendere dalla temperatura, dall'ecologia dell'ospite, dalla trasmissione, dalla presenza di altri simbionti e dalla selezione naturale.
La prevalenza osservata in un singolo campione non rappresenta quindi necessariamente una caratteristica permanente della specie.
L'ambiente e la temperatura
La temperatura può influenzare profondamente le interazioni tra batteri e artropodi.
Il metabolismo dell'insetto cambia.
La replicazione batterica cambia.
Il sistema immunitario può cambiare.
La trasmissione può cambiare.
Un'infezione che produce un determinato fenotipo a una temperatura può produrne uno differente in condizioni ambientali diverse.
Questo è particolarmente importante quando si studiano popolazioni naturali.
Il cambiamento climatico
La temperatura rappresenta anche un collegamento con l'ecologia globale.
Gli artropodi stanno modificando distribuzione e fenologia in risposta ai cambiamenti climatici.
Parallelamente cambiano le condizioni nelle quali vivono i loro simbionti.
Un aumento della temperatura può modificare la prevalenza di Rickettsia.
Può alterare la fitness dell'ospite.
Può modificare la competizione tra simbionti.
Può persino cambiare la dinamica delle malattie trasmesse dagli artropodi.
La microbiologia degli endosimbionti può quindi avere conseguenze ecologiche su scala molto più ampia.
Il rapporto tra simbionti e patogeni
La presenza di un endosimbionte può modificare la capacità dell'ospite di acquisire o trasmettere altri microrganismi.
Un batterio può competere per risorse.
Può modificare il sistema immunitario.
Può alterare l'ambiente cellulare.
Può influenzare il comportamento dell'ospite.
Di conseguenza, la presenza di Rickettsia può potenzialmente modificare anche il rapporto tra artropode e altri agenti infettivi.
Questo apre un campo di ricerca enorme.
L'importanza per le malattie trasmesse da vettori
Comprendere gli endosimbionti può avere conseguenze pratiche.
Se un batterio modifica la fitness di una zecca o di una zanzara, può influenzare indirettamente la trasmissione dei patogeni.
Se un simbionte può essere manipolato sperimentalmente, potrebbe diventare un bersaglio per strategie di controllo.
Ma la complessità del microbioma rende questi approcci difficili.
Eliminare un simbionte potrebbe produrre effetti inattesi sull'ospite.
Il paradosso di Rickettsia
Rickettsia presenta quindi un paradosso biologico.
Lo stesso genere è associato a patologie umane e a relazioni apparentemente molto più stabili con gli artropodi.
Questo dimostra che non basta conoscere il nome di un genere batterico.
Bisogna conoscere il ceppo, l'ospite, il tessuto colonizzato, la modalità di trasmissione e la storia evolutiva dell'associazione.
Il comportamento biologico non è determinato esclusivamente dal genere.
La filogenesi racconta una storia complessa
Le analisi evolutive suggeriscono che all'interno di Rickettsia si siano verificate transizioni multiple tra differenti modalità di trasmissione.
Alcune linee sono strettamente associate alla trasmissione verticale.
Altre mostrano modalità miste.
Questo rende Rickettsia particolarmente interessante per studiare come un batterio possa passare da una strategia di trasmissione all'altra.
L'evoluzione non procede quindi lungo una singola strada.
Un simbionte può cambiare ecologia.
Un ospite può cambiare.
Un nuovo ambiente può favorire una nuova modalità di trasmissione.
Dalla trasmissione verticale a quella orizzontale
La trasmissione verticale è estremamente efficiente quando il batterio è ben adattato all'ospite.
Ma presenta un limite.
Il batterio dipende dalla riproduzione dell'ospite.
La trasmissione orizzontale permette invece di passare tra individui indipendentemente dalla riproduzione.
Una combinazione delle due strategie può risultare particolarmente vantaggiosa.
La trasmissione verticale garantisce persistenza.
Quella orizzontale permette colonizzazione di nuovi ospiti.
Rickettsia rappresenta un sistema nel quale queste transizioni possono essere studiate in modo particolarmente interessante.
La selezione a livello del simbionte
Per comprendere Rickettsia bisogna cambiare scala.
L'ospite può avere interesse a mantenere una determinata sex ratio.
Il simbionte può avere interesse a modificarla.
L'ospite può beneficiare della riproduzione sessuale.
Il simbionte può beneficiare della partenogenesi.
L'ospite può subire un costo dalla presenza del batterio.
Il batterio può comunque aumentare.
Questi conflitti rappresentano un esempio di selezione che opera su replicatori con interessi parzialmente differenti.
La manipolazione non è intenzionale
È importante non antropomorfizzare il fenomeno.
Rickettsia non "decide" di uccidere i maschi.
Non "sceglie" di trasformare un individuo.
Non possiede un progetto cosciente.
Queste caratteristiche emergono attraverso l'evoluzione.
Le varianti batteriche che aumentano la trasmissione lasciano più discendenti.
Dopo numerose generazioni, i meccanismi più efficienti possono diventare prevalenti.
Il risultato può sembrare intenzionale.
Ma è il prodotto della selezione naturale.
La corsa agli armamenti
L'ospite non rimane passivo.
Se Rickettsia produce un costo, possono essere favorite varianti dell'ospite capaci di ridurlo.
L'ospite può evolvere resistenza.
Il batterio può evolvere nuove strategie.
Questo genera una corsa agli armamenti.
La relazione può quindi essere dinamica per milioni di anni.
Ogni adattamento crea una nuova pressione selettiva.
Ogni risposta dell'ospite crea una nuova opportunità evolutiva per il simbionte.
Il ruolo del sistema immunitario
Le cellule degli artropodi possiedono meccanismi capaci di riconoscere e controllare microrganismi intracellulari.
Rickettsia deve quindi evitare l'eliminazione.
Questo può avvenire attraverso una combinazione di strategie molecolari.
Il batterio può limitare la propria visibilità.
Può occupare compartimenti cellulari particolari.
Può modificare la risposta dell'ospite.
Può mantenere una densità compatibile con la propria sopravvivenza.
La persistenza è quindi il risultato di un equilibrio.
La densità batterica
Troppi batteri possono essere dannosi.
Troppo pochi possono rendere inefficace la trasmissione.
Il simbionte deve quindi mantenere una densità adeguata.
Questo problema è comune negli endosimbionti.
La densità può cambiare con lo sviluppo.
Può essere differente tra maschi e femmine.
Può essere diversa tra tessuti.
Può cambiare in funzione della temperatura e dello stato fisiologico dell'ospite.
La distribuzione nei tessuti
Rickettsia può essere presente in diversi tessuti dell'artropode.
La distribuzione non è necessariamente uniforme.
Alcuni tessuti possono rappresentare nicchie favorevoli.
Altri possono essere meno adatti.
La presenza nei tessuti riproduttivi è particolarmente significativa quando esiste trasmissione verticale.
La presenza in altri tessuti può invece essere collegata a funzioni metaboliche o fisiologiche.
Il rapporto con la fertilità
La fertilità dell'ospite rappresenta un punto cruciale.
Un simbionte maternamente trasmesso deve evitare, quando possibile, di ridurre eccessivamente la capacità riproduttiva della femmina.
Se la femmina non produce progenie, il batterio non passa alla generazione successiva.
Questo crea un limite alla virulenza.
Un simbionte troppo dannoso può autodistruggere il proprio percorso di trasmissione.
La stabilità della relazione
Quando una relazione dura per molte generazioni, la selezione può favorire una certa stabilizzazione.
L'ospite può sviluppare tolleranza.
Il batterio può ridurre gli effetti negativi.
La relazione può diventare relativamente equilibrata.
Questo non significa necessariamente che il batterio sia diventato completamente benefico.
Significa che l'equilibrio evolutivo può spostarsi verso una maggiore compatibilità.
Rickettsia come mutualista potenziale
In alcuni artropodi, gli endosimbionti Rickettsia-like possono contribuire alla fitness dell'ospite.
Possono fornire metaboliti.
Possono influenzare la disponibilità di nutrienti.
Possono contribuire alla resistenza a stress.
Possono modificare il sistema immunitario.
La stessa famiglia di batteri che comprende patogeni può quindi includere simbionti con effetti benefici.
Questo è uno dei motivi per cui la classificazione semplicistica tra "batterio buono" e "batterio cattivo" è biologicamente inadeguata.
La simbiosi come spettro
È più corretto immaginare un continuum.
Da una parte troviamo il parassitismo.
Dall'altra il mutualismo.
Tra i due esistono numerose condizioni intermedie.
Una relazione può cambiare in funzione dell'ambiente.
Un batterio può essere benefico quando l'ospite è sottoposto a stress.
Può essere costoso quando le risorse sono abbondanti.
Può essere neutro in determinate condizioni.
La simbiosi non è quindi una fotografia.
È un processo dinamico.
Il ruolo dell'ecologia
L'ecologia dell'ospite determina il valore della relazione.
Un artropode che vive in un ambiente povero di nutrienti può trarre grandi benefici da un simbionte metabolico.
Un artropode che vive in un ambiente ricco può invece subire soprattutto i costi dell'infezione.
La stessa Rickettsia può quindi avere effetti differenti in popolazioni differenti.
Questo rende indispensabile studiare gli endosimbionti direttamente nel loro ambiente naturale.
L'importanza delle popolazioni naturali
Gli esperimenti di laboratorio sono fondamentali.
Permettono di isolare variabili.
Permettono di confrontare individui infetti e non infetti.
Permettono di osservare la trasmissione.
Ma le popolazioni naturali sono molto più complesse.
Gli individui incontrano predatori.
Competono.
Vengono parassitizzati.
Subiscono variazioni climatiche.
Entrano in contatto con altri microrganismi.
La fitness osservata in laboratorio può quindi essere diversa da quella osservata in natura.
La genetica dell'ospite
Non tutti gli individui reagiscono allo stesso modo all'infezione.
La genetica dell'ospite può influenzare la compatibilità con Rickettsia.
Alcuni genotipi possono tollerare meglio il batterio.
Altri possono subire costi maggiori.
Questo introduce una nuova dimensione.
Non esiste soltanto la selezione sul batterio.
Esiste anche la selezione sull'interazione tra batterio e genotipo dell'ospite.
La genetica del simbionte
Anche Rickettsia non è geneticamente uniforme.
Esistono ceppi differenti.
Possono avere geni differenti.
Possono avere capacità metaboliche differenti.
Possono colonizzare tessuti differenti.
Possono produrre effetti riproduttivi differenti.
Il termine Rickettsia nasconde quindi una diversità biologica enorme.
La coevoluzione genoma-genoma
L'ospite e il simbionte possiedono genomi che interagiscono indirettamente.
Una proteina dell'ospite può riconoscere una molecola batterica.
Una molecola batterica può interferire con una proteina dell'ospite.
Una mutazione dell'uno può modificare la selezione sull'altro.
Nel lungo periodo, questo può produrre coevoluzione.
La storia di Rickettsia è quindi anche una storia di interazione tra genomi.
La biologia molecolare
Per comprendere questi fenomeni è necessario scendere al livello molecolare.
La manipolazione riproduttiva non avviene per magia.
Deve coinvolgere molecole.
Segnali.
Proteine.
Vie cellulari.
Regolazione genica.
La ricerca moderna cerca quindi di identificare i meccanismi attraverso i quali il batterio modifica il comportamento delle cellule dell'ospite.
In alcuni casi il quadro molecolare è ancora incompleto.
Ed è proprio questo a rendere il campo così interessante.
Il problema dei meccanismi ancora sconosciuti
Conosciamo molti fenomeni.
Sappiamo che alcune Rickettsia possono essere trasmesse verticalmente.
Sappiamo che alcune associazioni sono collegate alla manipolazione riproduttiva.
Sappiamo che esistono linee associate a diversi tipi di ospiti.
Ma sapere che un fenomeno esiste non significa comprenderne completamente il meccanismo.
La grande domanda della biologia moderna è spesso proprio questa.
Non soltanto "che cosa accade?", ma "come accade?".
L'importanza della genomica
Il sequenziamento dei genomi ha rivoluzionato lo studio degli endosimbionti.
Confrontando genomi differenti è possibile identificare geni conservati e geni specifici.
Si possono ricostruire perdite geniche.
Si possono individuare trasferimenti orizzontali.
Si possono studiare adattamenti alla vita intracellulare.
La genomica permette quindi di ricostruire la storia evolutiva di Rickettsia.
La metagenomica
La metagenomica aggiunge un ulteriore livello.
Non è necessario isolare ogni batterio.
È possibile analizzare il DNA presente in un campione.
Questo permette di scoprire simbionti precedentemente sconosciuti.
Può inoltre rivelare coinfezioni.
Una specie apparentemente associata a un singolo batterio può in realtà ospitare una comunità microbica complessa.
La nostra conoscenza della biodiversità endosimbiotica è quindi probabilmente ancora incompleta.
Rickettsia e la biodiversità degli artropodi
Più si studiano gli artropodi, più emerge la diffusione degli endosimbionti.
Insetti.
Ragni.
Acari.
Zecche.
Altri artropodi.
Molti di questi organismi possono ospitare batteri intracellulari.
Una parte significativa della loro biologia potrebbe quindi essere influenzata da microrganismi che non vediamo a occhio nudo.
La biodiversità entomologica non è quindi soltanto la diversità delle specie.
È anche la diversità delle associazioni tra specie e microbi.
L'invisibile dentro l'invisibile
Un insetto è già un organismo complesso.
Ma dentro l'insetto vivono altri organismi.
E dentro le cellule di questi organismi possono vivere altri sistemi biologici ancora.
Questa struttura gerarchica rende l'endosimbiosi una delle aree più profonde della biologia.
Rickettsia è un esempio perfetto.
L'artropode che osserviamo all'esterno può contenere milioni di cellule batteriche che influenzano la sua fisiologia.
La conseguenza per l'evoluzione degli artropodi
Gli endosimbionti non sono necessariamente un dettaglio secondario.
Se una Rickettsia modifica la riproduzione, può cambiare la frequenza dei genotipi nella popolazione.
Se modifica la sex ratio, può cambiare la struttura demografica.
Se altera la fertilità, può modificare il successo riproduttivo.
Se aumenta la resistenza a uno stress, può favorire determinati individui.
In questo modo il batterio può diventare una forza evolutiva.
L'isolamento riproduttivo
Le manipolazioni riproduttive possono avere conseguenze sulla struttura delle popolazioni.
Se alcuni individui sono compatibili soltanto con determinati partner infetti, possono formarsi barriere riproduttive.
Nel lungo periodo, queste barriere possono contribuire alla divergenza delle popolazioni.
Gli endosimbionti possono quindi influenzare indirettamente anche i processi che portano alla speciazione.
Una nuova interpretazione della selezione sessuale
La selezione sessuale viene normalmente studiata attraverso competizione tra maschi, scelta delle femmine e caratteristiche ornamentali.
Ma se un simbionte modifica la fertilità o la compatibilità tra individui, può influenzare direttamente il successo degli accoppiamenti.
La selezione sessuale può quindi essere condizionata dalla microbiologia.
Questo amplia enormemente il concetto di riproduzione.
Il ruolo delle femmine
Per i simbionti maternamente trasmessi, la femmina assume un'importanza particolare.
È il canale attraverso il quale il batterio attraversa le generazioni.
Questo crea una sorta di asimmetria evolutiva.
Il simbionte può favorire caratteristiche che aumentano il successo delle femmine infette.
Il maschio, invece, può diventare un elemento secondario.
Da questa semplice differenza possono derivare manipolazioni estremamente sofisticate.
Il maschio come vicolo cieco evolutivo
Per un batterio trasmesso esclusivamente attraverso le femmine, un maschio infetto non trasmette necessariamente l'infezione ai propri figli.
Questo non significa che il maschio sia sempre inutile.
Può contribuire alla riproduzione dell'ospite.
Ma dal punto di vista del batterio, la sua linea di trasmissione può terminare.
Questa asimmetria spiega perché l'evoluzione abbia prodotto più volte strategie che favoriscono le femmine.
La relazione con la teoria dell'unità di selezione
Rickettsia è un esempio utile per discutere un problema classico dell'evoluzione.
Su quale organismo agisce la selezione?
Sul singolo individuo?
Sul gene?
Sul simbionte?
Sulla popolazione?
La risposta dipende dal fenomeno studiato.
Un gene batterico che aumenta la trasmissione può essere favorito anche se produce un costo all'ospite.
La fitness del batterio e quella dell'ospite non sono necessariamente identiche.
L'endosimbiosi rende visibile questo conflitto.
Quando gli interessi coincidono
Non tutte le interazioni sono conflittuali.
Se Rickettsia aumenta la salute dell'ospite e contemporaneamente aumenta la propria trasmissione, gli interessi coincidono.
Il batterio beneficia.
L'ospite beneficia.
La selezione può favorire entrambi.
Questo può rappresentare il punto di partenza per una relazione mutualistica stabile.
Quando gli interessi divergono
Quando il batterio beneficia dalla morte dei maschi, dalla partenogenesi o da altre manipolazioni, l'interesse può divergere.
L'ospite può subire un costo.
Il batterio può ottenere un vantaggio.
La selezione favorisce allora il conflitto.
Questa alternanza tra cooperazione e conflitto è una delle caratteristiche fondamentali della simbiosi.
Rickettsia come laboratorio evolutivo
Studiare Rickettsia significa quindi studiare contemporaneamente microbiologia, genetica, ecologia, evoluzione, entomologia e medicina.
È difficile trovare molti sistemi biologici capaci di collegare così tanti livelli.
Il batterio può essere studiato al microscopio.
Può essere sequenziato.
Può essere seguito nella trasmissione materna.
Può essere studiato in popolazioni naturali.
Può essere analizzato nel contesto delle malattie trasmesse da vettori.
Ogni prospettiva aggiunge un pezzo alla storia.
Una biologia senza confini netti
Rickettsia dimostra che le categorie biologiche non sono sempre nette.
Simbionte.
Parassita.
Patogeno.
Mutualista.
Endosimbionte.
Vettore.
Queste parole descrivono aspetti differenti della relazione.
Un batterio può essere patogeno in un contesto e simbionte in un altro.
Può avere una trasmissione verticale in un ospite e una trasmissione differente in un altro.
Può produrre effetti benefici o dannosi.
La biologia reale è più complessa delle categorie che utilizziamo per descriverla.
Il futuro della ricerca
Il futuro dello studio di Rickettsia sarà probabilmente sempre più integrato.
Non basterà sequenziare il batterio.
Sarà necessario sequenziare l'ospite.
Studiare il microbioma.
Analizzare l'espressione genica.
Osservare lo sviluppo embrionale.
Misurare la trasmissione.
Seguire le popolazioni naturali.
Studiare le interazioni con altri microrganismi.
Solo combinando questi livelli sarà possibile comprendere davvero la relazione.
Rickettsia e la manipolazione della vita
La cosa più impressionante non è che un batterio possa vivere dentro un insetto.
La cosa più impressionante è che possa, in determinate associazioni, interferire con processi fondamentali come la riproduzione.
La riproduzione è uno dei sistemi più conservati e importanti della vita.
Modificarla significa intervenire nel punto attraverso il quale il genoma dell'ospite passa alla generazione successiva.
Rickettsia dimostra che un organismo microscopico può entrare in questo processo e modificarne il risultato.
La prospettiva dell'entomologo
Per l'entomologo, questo significa che osservare un insetto non è più sufficiente.
Due individui apparentemente identici possono avere microbiomi differenti.
Possono avere fitness differente.
Possono produrre sex ratio differenti.
Possono reagire diversamente agli stress.
Possono trasmettere microrganismi differenti.
La microbiologia diventa quindi parte integrante dell'entomologia moderna.
La prospettiva evolutiva
Dal punto di vista evolutivo, Rickettsia mostra qualcosa di ancora più profondo.
L'evoluzione non riguarda soltanto organismi indipendenti.
Riguarda anche associazioni.
Un organismo può diventare un ambiente per un altro.
Un genoma può diventare dipendente da un altro.
Un simbionte può modificare la fitness del proprio ospite.
L'ospite può evolvere in risposta.
La selezione può quindi operare su sistemi biologici intrecciati.
La grande lezione di Rickettsia
La grande lezione è che la vita è composta da interazioni.
Un insetto non vive realmente da solo.
Un ragno non vive realmente da solo.
Una zecca non vive realmente da sola.
All'interno di questi organismi esistono comunità microbiche che possono influenzarne metabolismo, immunità, riproduzione e adattamento.
Rickettsia è una delle dimostrazioni più eleganti di questo principio.
Conclusione
Rickettsia è molto più del batterio che associamo alle malattie trasmesse dalle zecche.
È un genere che comprende una diversità biologica enorme e che permette di osservare differenti strategie evolutive di interazione con gli artropodi.
Alcune linee sono associate a patogenicità nei vertebrati.
Altre vivono come endosimbionti degli invertebrati.
Alcune possono essere trasmesse verticalmente.
Alcune possono influenzare la fertilità.
Alcune sono associate a manipolazioni della riproduzione.
In determinate associazioni possono comparire fenomeni come uccisione dei maschi, partenogenesi o alterazioni della sex ratio.
La loro importanza non deriva soltanto dalla capacità di vivere all'interno delle cellule.
Deriva dalla possibilità di diventare parte integrante dell'evoluzione dell'ospite.
Un batterio che entra nella linea germinale entra infatti direttamente nel processo attraverso il quale l'organismo genera la generazione successiva.
Da quel momento, il suo destino diventa legato a quello dell'artropode.
Ma non necessariamente in maniera pacifica.
Il batterio può favorire l'ospite.
Può danneggiarlo.
Può manipolarlo.
Può competere con altri simbionti.
Può diventare mutualista.
Può cambiare modalità di trasmissione.
Può persino passare, nella storia evolutiva, da una relazione strettamente verticale a una relazione più complessa.
Rickettsia rappresenta quindi una delle migliori dimostrazioni del fatto che la simbiosi non è semplicemente una convivenza.
È evoluzione in tempo reale.
È conflitto.
È cooperazione.
È adattamento.
È competizione tra genomi.
È trasmissione attraverso le generazioni.
Ed è anche una dimostrazione straordinaria di quanto possa essere complesso un organismo apparentemente semplice.
Quando osserviamo un ragno, una zecca, una pulce o un insetto, vediamo un animale.
Ma dentro le sue cellule possono esistere altri organismi.
Alcuni di questi possono essere invisibili al microscopio ottico tradizionale.
Eppure possono influenzare il destino dell'intera popolazione.
Questa è forse la caratteristica più affascinante di Rickettsia.
Un batterio microscopico può diventare una forza evolutiva macroscopica.
E proprio per questo Rickettsia occupa un posto fondamentale nella comprensione moderna degli endosimbionti degli artropodi.