il virus che trasforma una falena dannosa in un bersaglio biologico
Tra i virus che infettano gli insetti esiste una categoria particolarmente affascinante: quella degli agenti patogeni che, invece di essere considerati esclusivamente una minaccia, vengono trasformati dall'uomo in strumenti di controllo…
Cydia pomonella granulovirus: il virus che trasforma una falena dannosa in un bersaglio biologico
Tra i virus che infettano gli insetti esiste una categoria particolarmente affascinante: quella degli agenti patogeni che, invece di essere considerati esclusivamente una minaccia, vengono trasformati dall'uomo in strumenti di controllo biologico.
Il Cydia pomonella granulovirus, abbreviato CpGV, appartiene esattamente a questa categoria.
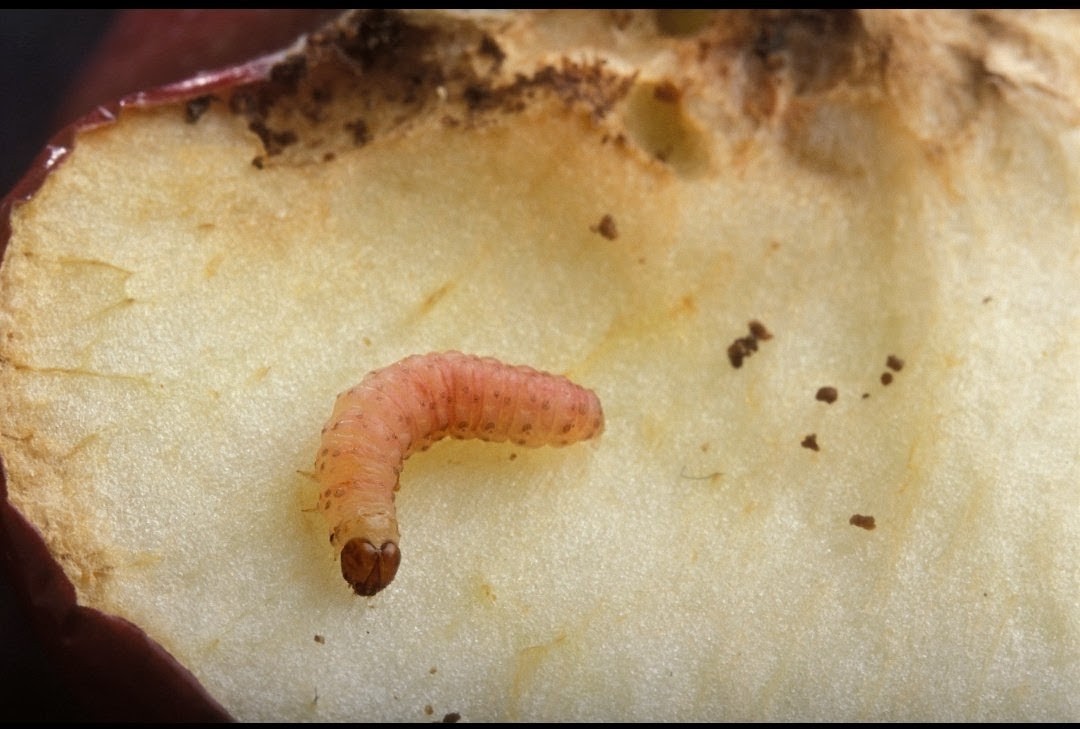
Il suo ospite principale è Cydia pomonella, comunemente conosciuta come carpocapsa o carpocapsa del melo, una falena le cui larve possono provocare danni importanti ai frutti di melo e di altre piante da frutto.
La relazione tra questo insetto e il suo virus è un esempio straordinario di coevoluzione.
Da una parte esiste una larva che cerca di alimentarsi, crescere e completare il proprio ciclo vitale.
Dall'altra esiste un virus che deve entrare nell'organismo, moltiplicarsi, produrre nuove particelle infettive e raggiungere nuovi ospiti.
L'uomo si è inserito in questa relazione utilizzando il virus come bioinsetticida.
Il risultato è uno dei casi più interessanti di entomologia applicata: un patogeno naturale viene sfruttato per controllare una popolazione di insetti senza ricorrere necessariamente alla stessa strategia degli insetticidi chimici convenzionali.
Ma la storia di CpGV non si ferma qui.
L'uso prolungato del virus ha esercitato una pressione selettiva sulle popolazioni di Cydia pomonella.
In alcune popolazioni sono comparsi individui fortemente resistenti a determinati isolati virali.
Sono stati quindi selezionati nuovi genotipi di CpGV capaci di superare questa resistenza.
Il risultato è una vera corsa agli armamenti evolutiva.
Che cos'è il Cydia pomonella granulovirus
CpGV è un virus entomopatogeno appartenente alla famiglia Baculoviridae.
La classificazione moderna lo colloca nel genere Betabaculovirus e nella specie Betabaculovirus cypomonellae.
Il suo ospite di riferimento è Cydia pomonella.
A differenza di molti virus che infettano gli animali e che possono essere trasmessi attraverso fluidi biologici, CpGV possiede una caratteristica fondamentale per la propria ecologia: produce strutture di occlusione estremamente resistenti che proteggono le particelle virali nell'ambiente.
Queste strutture permettono al virus di persistere al di fuori dell'ospite e di raggiungere nuove larve.
Un virus altamente specializzato
Una delle caratteristiche più interessanti di CpGV è la sua marcata specializzazione.
Non è un virus genericamente "letale per gli insetti".
La sua storia evolutiva è legata in maniera molto stretta al proprio ospite.
Questa specializzazione rappresenta uno dei motivi per cui CpGV è particolarmente interessante come agente di controllo biologico.
La specificità riduce infatti il rischio di colpire indiscriminatamente organismi appartenenti ad altri gruppi.
Naturalmente, specificità non significa necessariamente assoluta esclusività.
Alcuni isolati e formulazioni possono mostrare attività anche contro specie affini, ma la biologia di CpGV rimane fortemente associata ai lepidotteri tortricidi e in particolare alla carpocapsa.
La carpocapsa
Per comprendere CpGV bisogna conoscere il suo ospite.
Cydia pomonella è una piccola falena appartenente alla famiglia Tortricidae.
L'adulto è relativamente poco appariscente.
Il problema agricolo è rappresentato soprattutto dalla larva.
Dopo la schiusa, la larva deve rapidamente trovare un punto adatto per iniziare l'alimentazione.
Nel caso del melo, il comportamento della larva la porta verso il frutto.
Una volta penetrata nel frutto, può diventare molto più difficile raggiungerla con molti trattamenti convenzionali.
Questa caratteristica rende particolarmente interessante un virus che deve essere ingerito dalla larva nelle prime fasi dell'infezione.
Il momento decisivo
Il successo di CpGV dipende fortemente dal comportamento della larva.
La larva appena schiusa entra in contatto con la superficie trattata.
Se ingerisce particelle virali sufficienti, il processo infettivo può iniziare.
Una volta penetrata profondamente nel frutto, l'opportunità di esposizione al virus può diminuire.
Per questo la tempistica dell'applicazione è fondamentale nella pratica agricola.
CpGV non funziona semplicemente perché "si trova sull'albero".
Deve incontrare l'ospite nella fase biologica appropriata.
Il granulovirus
Il termine granulovirus deriva dal caratteristico aspetto delle strutture di occlusione prodotte dal virus.
Nei granulovirus le particelle virali vengono racchiuse in strutture cristalline costituite principalmente dalla proteina granulina.
Queste strutture sono differenti dai grandi poliedri tipici dei nucleopoliedrovirus.
Il confronto con l'Autographa californica multiple nucleopolyhedrovirus, trattato nell'articolo precedente, è quindi particolarmente utile.
Entrambi appartengono ai Baculoviridae.
Entrambi producono corpi di occlusione.
Ma la loro organizzazione e la loro biologia presentano differenze importanti.
La granulina
La granulina è una delle proteine strutturali caratteristiche dei granulovirus.
La sua funzione principale è contribuire alla formazione della matrice che racchiude le particelle virali.
Questa struttura protegge il virione dall'ambiente esterno.
Il virus deve infatti sopravvivere abbastanza a lungo da essere ingerito da una nuova larva.
La granulina contribuisce quindi direttamente alla strategia ecologica del virus.
Perché il virus ha bisogno di un corpo di occlusione
Una particella virale libera è vulnerabile.
Radiazione ultravioletta.
Disidratazione.
Temperatura.
Agenti chimici.
Microorganismi ambientali.
Tutti questi fattori possono danneggiare il materiale genetico virale.
Il corpo di occlusione rappresenta una soluzione evolutiva.
Il virus costruisce una sorta di involucro biologico capace di proteggerlo.
Quando la struttura viene ingerita dall'ospite, l'ambiente cambia completamente.
La protezione esterna non è più necessaria.
Il virione può essere liberato e iniziare l'infezione.
L'ingresso nell'ospite
L'infezione di CpGV è strettamente associata all'ingestione delle particelle virali.
La larva ingerisce il corpo di occlusione insieme al materiale vegetale contaminato.
Il corpo di occlusione raggiunge l'apparato digerente.
Qui incontra un ambiente molto diverso da quello esterno.
Il pH e le condizioni chimiche dell'intestino favoriscono la dissoluzione della matrice proteica.
Le particelle virali vengono liberate.
La barriera intestinale
L'intestino rappresenta una delle prime grandi barriere che il virus deve superare.
Le cellule epiteliali intestinali separano il contenuto del lume dall'organismo della larva.
CpGV deve quindi riuscire a interagire con queste cellule e attraversare la barriera.
Una volta superata questa fase, il virus può raggiungere altri tessuti.
Dalla cellula intestinale all'organismo
L'infezione iniziale può rapidamente trasformarsi in un processo sistemico.
Il virus replica il proprio DNA.
Produce proteine.
Forma nuove particelle.
Le cellule infette vengono utilizzate come fabbriche biologiche.
Le nuove particelle possono raggiungere ulteriori cellule.
La quantità di virus aumenta.
Il DNA virale
A differenza dei virus a RNA che abbiamo incontrato nella parte dedicata ai virus delle api, CpGV possiede un genoma a DNA.
La sequenza completa di riferimento pubblicata nel 2001 contiene circa 123.500 paia di basi e 143 ORF di almeno 150 nucleotidi.
Questa dimensione permette al virus di possedere un repertorio genetico molto più articolato rispetto a virus estremamente compatti.
Il genoma come macchina biologica
Il genoma di CpGV contiene geni coinvolti nella replicazione del DNA, nella regolazione dell'espressione genica, nella manipolazione delle cellule dell'ospite e nella costruzione delle nuove particelle virali.
L'analisi genomica ha mostrato che una grande parte degli ORF possiede omologhi in altri baculovirus.
Questo permette di ricostruire la storia evolutiva del virus confrontandolo con altri membri della famiglia.
Un genoma particolare
CpGV possiede anche caratteristiche genomiche che lo distinguono da altri baculovirus.
Nel genoma di riferimento non sono presenti alcune sequenze tipiche trovate in altri nucleopoliedrovirus.
Per esempio, manca il gene gp64, che svolge un ruolo importante nell'ingresso cellulare di alcuni NPV.
Manca inoltre lef-7, associato alla replicazione del DNA in altri baculovirus.
Queste differenze dimostrano che non esiste un'unica architettura genomica valida per tutti i baculovirus.
Le proteine anti-apoptotiche
Un aspetto particolarmente interessante è la presenza di più omologhi di geni iap, cioè inhibitor of apoptosis.
L'apoptosi è una forma programmata di morte cellulare.
Per il virus rappresenta un problema.
Se una cellula infetta si autodistrugge troppo presto, il virus potrebbe non avere il tempo necessario per completare la propria replicazione.
Le proteine anti-apoptotiche possono quindi contribuire a mantenere la cellula utilizzabile dal virus.
La battaglia contro la morte cellulare
La cellula non è una macchina passiva.
Quando percepisce un'infezione, può attivare meccanismi di difesa.
Tra questi può esserci l'apoptosi.
Il virus deve quindi trovare un equilibrio.
Deve impedire alla cellula di morire prematuramente.
Ma deve anche completare il proprio ciclo replicativo.
Questa interazione rappresenta una delle grandi battaglie molecolari tra virus e ospite.
La replicazione
Una volta entrato nella cellula, il DNA virale viene utilizzato per produrre RNA e proteine virali.
La replicazione procede attraverso fasi temporali.
Prima vengono prodotte proteine necessarie per modificare l'ambiente cellulare.
Successivamente vengono sintetizzate proteine coinvolte nella replicazione del DNA.
Infine vengono prodotte numerose proteine strutturali necessarie alla formazione dei nuovi virioni.
La fase tardiva
Durante la fase tardiva l'attività della cellula è profondamente modificata.
La produzione di componenti virali aumenta.
Le proteine strutturali vengono accumulate.
Il DNA virale viene replicato in grandi quantità.
La cellula diventa progressivamente una fabbrica virale.
L'assemblaggio
Il DNA viene incorporato nelle nuove particelle.
Le proteine strutturali formano il rivestimento.
I virioni vengono assemblati.
Successivamente vengono associate alle strutture di occlusione.
Il virus prepara così la propria uscita e la futura trasmissione.
La morte della larva
L'infezione progredisce fino a compromettere profondamente la fisiologia della larva.
L'animale smette progressivamente di alimentarsi normalmente.
La crescita viene compromessa.
I tessuti vengono invasi dal virus.
Alla fine la larva muore.
A questo punto il ciclo ecologico entra nella fase successiva.
Il corpo della larva come incubatore
La larva morta contiene una quantità enorme di materiale virale.
Il virus ha trasformato il corpo dell'ospite in un vero incubatore.
Le particelle vengono accumulate nelle strutture di occlusione.
Quando il corpo si disgrega, queste strutture possono contaminare la superficie vegetale.
La morte dell'ospite diventa quindi uno strumento di trasmissione.
La contaminazione del frutto
Nel caso della carpocapsa, il processo è particolarmente interessante perché larva, frutto e virus possono entrare in contatto in uno spazio molto ristretto.
La larva infetta muore.
Il materiale virale può raggiungere l'ambiente.
Altre larve possono successivamente ingerirlo.
Il frutto diventa quindi un punto di passaggio epidemiologico.
La trasmissione orizzontale
CpGV utilizza principalmente la trasmissione orizzontale.
Una larva infetta contribuisce alla contaminazione dell'ambiente.
Un'altra larva entra in contatto con il virus.
Lo ingerisce.
Il ciclo ricomincia.
Studi sperimentali hanno mostrato che il comportamento della larva può influenzare fortemente la probabilità di acquisire l'infezione durante la trasmissione orizzontale.
Il comportamento dell'ospite
Questo è un punto entomologicamente fondamentale.
La trasmissione non dipende soltanto dalla quantità di virus presente.
Dipende da ciò che fa l'insetto.
Dove si muove.
Dove si alimenta.
Quanto tempo rimane sulla superficie contaminata.
Quanto rapidamente penetra nel frutto.
Il comportamento diventa quindi parte dell'epidemiologia virale.
Il virus e il comportamento alimentare
La larva deve mangiare per crescere.
Questo comportamento, indispensabile alla sua sopravvivenza, diventa contemporaneamente il punto debole sfruttato dal virus.
La larva ingerisce il virus proprio mentre cerca di procurarsi energia.
È una delle strategie più eleganti dell'entomologia virale.
Il virus come "trappola biologica"
CpGV non deve inseguire attivamente la larva.
Non deve penetrare attraverso una ferita.
Non deve trovare un insetto adulto.
È sufficiente che la particella virale si trovi nel luogo dove la larva si alimenta.
Il comportamento dell'ospite fa il resto.
Persistenza ambientale
La sopravvivenza ambientale è fondamentale.
Un virus utilizzato come bioinsetticida deve rimanere infettivo abbastanza a lungo da incontrare le larve bersaglio.
La radiazione ultravioletta rappresenta uno dei principali fattori capaci di ridurre la persistenza dei baculovirus.
Anche pioggia e condizioni meteorologiche influenzano la permanenza del materiale virale sulle piante.
Perché le applicazioni devono essere ripetute
La persistenza relativamente breve sulla superficie vegetale rappresenta una delle limitazioni pratiche dell'utilizzo di CpGV.
Indicazioni tecniche riportano residui efficaci nell'ordine di alcuni giorni e la necessità di ripetere le applicazioni in funzione della durata della schiusa delle uova e delle condizioni ambientali.
Questo è molto diverso dal comportamento di un agente chimico persistente.
Il bioinsetticida deve incontrare continuamente nuove larve.
Il controllo biologico
CpGV è diventato un importante strumento di controllo della carpocapsa.
La sua caratteristica più interessante è la specificità.
Invece di agire indiscriminatamente su molti insetti, il virus sfrutta una relazione biologica molto più ristretta.
Questa caratteristica lo rende particolarmente interessante nei programmi di difesa integrata.
L'integrazione con altre strategie
CpGV può essere utilizzato insieme ad altre tecniche.
Una delle combinazioni più interessanti è quella con la confusione sessuale.
La confusione sessuale riduce la probabilità di accoppiamento della carpocapsa.
Il virus colpisce invece le larve.
Le due strategie agiscono quindi su fasi differenti del ciclo biologico.
Il vantaggio della complementarità
Un sistema di controllo integrato può essere più robusto di una strategia basata su un solo agente.
Se la popolazione viene disturbata nella fase riproduttiva e contemporaneamente le larve vengono colpite dal virus, la pressione complessiva sulla popolazione aumenta.
L'obiettivo non è necessariamente eliminare ogni individuo.
È ridurre la popolazione al di sotto della soglia alla quale il danno economico diventa importante.
Il problema della resistenza
Ed è qui che la storia di CpGV diventa ancora più interessante.
L'uso prolungato di un singolo genotipo virale può esercitare una forte pressione selettiva.
Le larve sensibili muoiono.
Gli individui resistenti sopravvivono.
Questi individui contribuiscono alla generazione successiva.
Nel tempo la frequenza della resistenza può aumentare.
La resistenza a CpGV-M
Nel 2004 furono individuate in Francia popolazioni di Cydia pomonella con bassa suscettibilità al ceppo CpGV-M utilizzato nei trattamenti.
In laboratorio, una linea resistente mostrò una resistenza superiore di oltre 60.000 volte rispetto alla linea suscettibile sulla base delle LC50.
Un risultato di questa portata dimostra quanto rapidamente una pressione selettiva possa modificare una popolazione.
Non è il virus a "diventare debole"
È importante comprendere la differenza.
Quando compare resistenza, non significa necessariamente che il virus abbia perso potenza.
Può essere cambiata la popolazione dell'ospite.
Il trattamento elimina soprattutto gli individui suscettibili.
Gli individui geneticamente capaci di resistere hanno una probabilità maggiore di sopravvivere.
La selezione naturale modifica quindi la composizione della popolazione.
Una corsa agli armamenti
A questo punto emerge un classico scenario coevolutivo.
Il virus esercita pressione sull'insetto.
L'insetto evolve resistenza.
L'uomo introduce un nuovo isolato virale.
Il nuovo isolato supera parte della resistenza.
La popolazione dell'insetto può nuovamente evolvere.
Il processo continua.
È una corsa agli armamenti biologica.
I diversi genotipi di CpGV
CpGV non è una singola entità geneticamente uniforme.
Sono stati identificati diversi gruppi genomici.
Le analisi hanno evidenziato differenti linee evolutive e una notevole diversità tra gli isolati provenienti da aree geografiche differenti.
Questa diversità rappresenta una risorsa preziosa per la lotta biologica.
Il ceppo messicano
Il ceppo noto come CpGV-M ha avuto un'importanza enorme nella storia del bioinsetticida.
Per anni è stato utilizzato come riferimento nelle formulazioni commerciali.
La sua diffusione ha però contribuito alla selezione di popolazioni resistenti.
La storia del ceppo M mostra quindi contemporaneamente il successo e il limite della standardizzazione.
I ceppi capaci di superare la resistenza
Sono stati identificati isolati capaci di infettare popolazioni resistenti.
Tra questi, CpGV-R5 e altri genotipi hanno mostrato capacità di superare determinati meccanismi di resistenza.
In esperimenti su popolazioni resistenti, alcuni isolati hanno mantenuto una forte attività patogena dove CpGV-M risultava molto meno efficace.
Le miscele di genotipi
Una strategia particolarmente interessante è l'utilizzo di popolazioni virali geneticamente eterogenee.
Invece di affidarsi a un singolo genotipo, si possono utilizzare combinazioni di isolati differenti.
Questo può rendere più difficile per l'ospite sviluppare una resistenza efficace contro l'intera popolazione virale.
Esperimenti hanno mostrato che miscele di genotipi possono controllare popolazioni resistenti in maniera efficace.
La diversità come arma
La biodiversità virale può quindi diventare uno strumento di gestione.
Una popolazione virale geneticamente diversificata può contenere varianti capaci di superare differenti forme di resistenza.
Questo è un concetto molto simile a quello utilizzato in altre strategie di gestione della resistenza.
La monocultura genetica è fragile.
La diversità può essere più robusta.
L'evoluzione dentro il bioinsetticida
Qui emerge un concetto particolarmente affascinante.
Quando l'uomo utilizza un virus come agente di controllo, non sta utilizzando un oggetto statico.
Sta utilizzando una popolazione biologica.
Quella popolazione evolve.
L'ospite evolve.
Entrambi rispondono alla pressione selettiva.
Il bioinsetticida è quindi parte di un sistema evolutivo dinamico.
La specificità come vantaggio
Uno dei principali vantaggi di CpGV è la sua specificità verso la carpocapsa.
Un agente biologico altamente specifico può ridurre l'impatto su organismi non bersaglio rispetto a trattamenti meno selettivi.
Questo non significa che ogni applicazione biologica sia automaticamente innocua.
Significa che la valutazione del rischio può essere molto più favorevole quando il patogeno possiede un intervallo di ospiti ristretto.
L'impatto sugli artropodi non bersaglio
Studi di campo hanno valutato anche l'impatto dei trattamenti a base di CpGV sugli artropodi non bersaglio.
La specificità del virus rappresenta uno dei motivi per cui viene considerato uno strumento interessante nei programmi di difesa integrata.
Il virus come parte dell'ecosistema
CpGV non vive in isolamento.
Esiste un ambiente.
Esiste il melo.
Esiste la carpocapsa.
Esistono altri insetti.
Esistono microrganismi.
Esistono predatori e parassitoidi.
Il virus entra in questa rete.
Il suo effetto finale dipende dall'interazione con tutti questi elementi.
Il ruolo della fenologia
La biologia della carpocapsa è strettamente legata alla stagione.
La comparsa degli adulti.
La deposizione delle uova.
La schiusa.
La penetrazione delle larve nei frutti.
Tutto questo avviene secondo una determinata sequenza temporale.
Per utilizzare CpGV efficacemente bisogna sincronizzare il trattamento con la fase in cui le larve sono esposte.
La larva neonata
La larva appena schiusa è particolarmente importante.
È piccola.
È mobile.
È alla ricerca di un punto adatto per alimentarsi.
Durante questa finestra temporale può incontrare il virus presente sulla superficie della pianta.
Una volta penetrata nel frutto, la finestra di esposizione diminuisce.
Il virus e il frutto
Il frutto rappresenta contemporaneamente rifugio e fonte alimentare.
La larva vi entra per proteggersi.
Ma entrando nel frutto riduce anche il proprio contatto con l'ambiente esterno.
Da un punto di vista evolutivo, questo comportamento può essere vantaggioso per l'insetto.
Dal punto di vista del virus, invece, rende fondamentale colpire l'ospite prima della penetrazione.
Un equilibrio temporale
La relazione può essere rappresentata come una corsa contro il tempo.
Il virus deve essere ingerito.
La larva deve ancora essere esposta.
L'infezione deve superare l'intestino.
La replicazione deve procedere.
L'ospite deve rimanere vivo abbastanza a lungo perché il virus completi il proprio ciclo.
La tempistica è quindi fondamentale in ogni fase.
La morte come strategia evolutiva
La morte dell'ospite può sembrare un fallimento.
Ma per un virus entomopatogeno è spesso parte della strategia.
Il virus accumula particelle nell'organismo.
La larva muore.
Il corpo diventa una fonte di inoculo.
Nuove larve ingeriscono il virus.
La morte dell'ospite permette quindi la trasmissione.
Un patogeno che usa il comportamento dell'ospite
CpGV non controlla direttamente la larva.
Sfrutta il suo comportamento naturale.
La larva cerca il cibo.
Il virus si trova sul cibo.
La larva ingerisce il virus.
Questo è un principio fondamentale dell'ecologia dei patogeni: il comportamento necessario alla sopravvivenza dell'ospite può diventare contemporaneamente una via di trasmissione.
La specificità geografica
Le popolazioni di CpGV non sono identiche in tutto il mondo.
Sono stati identificati genotipi associati a differenti regioni geografiche.
Le analisi filogenetiche hanno permesso di ricostruire linee evolutive differenti.
Questa diversità geografica può essere estremamente utile quando si cerca un isolato capace di superare una popolazione resistente.
L'evoluzione dei ceppi
Le differenze tra gli isolati possono derivare da mutazioni, ricombinazioni e selezione.
Una variante che replica meglio in una determinata popolazione di ospiti può aumentare di frequenza.
Un'altra può risultare più efficace in un ambiente differente.
La diversità genetica diventa quindi una banca evolutiva.
La ricerca genomica
Il sequenziamento completo del genoma ha trasformato lo studio di CpGV.
Prima era possibile osservare soprattutto gli effetti biologici.
Oggi possiamo confrontare interi genomi.
Possiamo identificare mutazioni.
Possiamo ricostruire filogenesi.
Possiamo individuare regioni associate alla resistenza.
Possiamo confrontare isolati provenienti da continenti diversi.
I nuovi genomi
La ricerca genomica continua.
Nel 2024 è stato descritto un nuovo ceppo di CpGV con elevata attività entomopatogena e un genoma di circa 123.862 bp.
Nel 2025 è stata pubblicata anche la sequenza quasi completa di un altro isolato, BZR GV 10, lungo circa 123.362 bp e con oltre il 99% di similarità rispetto all'isolato di riferimento Mexico/1963.
Questo dimostra che CpGV continua a essere oggetto di ricerca genomica anche oggi.
Perché cercare nuovi isolati
Se una popolazione di carpocapsa evolve resistenza a un determinato genotipo, un nuovo isolato può offrire una soluzione.
Non significa necessariamente che il nuovo virus sarà sempre efficace.
Significa che la diversità naturale dei baculovirus rappresenta una fonte di nuove possibilità.
L'entomologia diventa quindi anche una ricerca di varianti biologiche.
Il virus come risorsa genetica
Gli isolati naturali rappresentano una sorta di biblioteca evolutiva.
Ogni ceppo possiede una storia.
Ogni genoma contiene mutazioni.
Ogni popolazione ha interagito con differenti ospiti.
Questa diversità può essere sfruttata per sviluppare strategie di controllo più durature.
Il problema della resistenza futura
Ma anche le nuove formulazioni possono generare pressione selettiva.
Se utilizziamo continuamente lo stesso meccanismo, gli individui capaci di evitarlo possono essere favoriti.
La gestione della resistenza deve quindi essere considerata fin dall'inizio.
Non bisogna aspettare che la resistenza diventi generalizzata.
La gestione integrata della resistenza
Una strategia razionale può combinare diversi meccanismi di controllo.
CpGV.
Confusione sessuale.
Altri strumenti biologici.
Tecniche agronomiche.
Monitoraggio della popolazione.
L'obiettivo è evitare che la selezione naturale venga concentrata esclusivamente su un singolo fattore.
CpGV e agricoltura sostenibile
L'interesse verso CpGV deriva anche dalla ricerca di sistemi di protezione delle colture più selettivi.
La possibilità di utilizzare un virus naturale contro un insetto specifico rappresenta un esempio di come la conoscenza dell'ecologia degli insetti possa essere trasformata in una strategia pratica.
Non si tratta semplicemente di "uccidere insetti".
Si tratta di sfruttare una relazione biologica già esistente.
Il ruolo dell'entomologia applicata
CpGV dimostra quanto l'entomologia possa uscire dai libri e diventare uno strumento operativo.
Per utilizzare il virus bisogna conoscere:
il ciclo dell'insetto;
il comportamento larvale;
la fenologia;
la riproduzione;
la dinamica della popolazione;
la suscettibilità;
la genetica della resistenza;
le condizioni ambientali.
Il virus è soltanto uno dei componenti del sistema.
Un esempio di ecologia molecolare
CpGV rappresenta contemporaneamente un fenomeno macroscopico e microscopico.
A livello macroscopico vediamo una larva che muore.
A livello cellulare vediamo la replicazione del DNA virale.
A livello molecolare osserviamo l'interazione tra proteine virali e proteine dell'ospite.
A livello evolutivo osserviamo la selezione di popolazioni resistenti.
A livello agricolo osserviamo la riduzione del danno ai frutti.
È lo stesso fenomeno osservato a scale differenti.
Dalla cellula al frutteto
Questa è forse la caratteristica più affascinante di CpGV.
Una singola particella virale interagisce con una cellula.
La cellula produce nuove particelle.
L'infezione uccide una larva.
La larva contamina l'ambiente.
Altre larve vengono infettate.
La popolazione della carpocapsa diminuisce.
Il danno al frutteto può diminuire.
Un processo molecolare diventa quindi un fenomeno ecologico ed economico.
Un esempio di superorganismo?
A differenza dei virus delle api sociali, CpGV non sfrutta principalmente una colonia come superorganismo.
Ma può comunque essere studiato attraverso la struttura della popolazione dell'ospite.
Ogni larva è un'unità individuale.
La popolazione della carpocapsa è invece il vero bersaglio dell'intervento.
L'obiettivo del controllo biologico non è eliminare necessariamente ogni larva, ma modificare la dinamica della popolazione.
La selezione naturale in tempo reale
La storia della resistenza a CpGV è una dimostrazione quasi da manuale della selezione naturale.
Il virus elimina gli individui sensibili.
Gli individui resistenti sopravvivono.
La loro frequenza aumenta.
La popolazione diventa meno suscettibile.
L'uomo introduce nuovi isolati.
La pressione selettiva cambia.
Il processo ricomincia.
È evoluzione osservabile attraverso la gestione agricola.
Una lezione generale
CpGV insegna che nessun metodo di controllo biologico deve essere considerato statico.
Anche quando l'agente è naturale, l'evoluzione continua.
Anche quando il prodotto è selettivo, l'ospite può adattarsi.
Anche quando una strategia funziona perfettamente per anni, può perdere efficacia.
La biologia non garantisce soluzioni permanenti.
Garantisce sistemi dinamici.
Il futuro di CpGV
Il futuro probabilmente passerà attraverso una combinazione di genomica, ecologia, genetica della resistenza e gestione integrata.
Il sequenziamento permette di conoscere sempre meglio la diversità dei ceppi.
La genetica permette di studiare i meccanismi di resistenza.
L'ecologia permette di capire quando e dove il virus funziona meglio.
L'agronomia permette di inserirlo all'interno di strategie più ampie.
Conclusione
Il Cydia pomonella granulovirus è uno degli esempi più affascinanti di virus entomopatogeno conosciuti dall'entomologia applicata.
È un virus altamente specializzato.
Infetta la larva della carpocapsa.
Entra nell'organismo attraverso l'alimentazione.
Supera la barriera intestinale.
Replica il proprio DNA.
Trasforma le cellule dell'ospite in fabbriche virali.
Produce nuove particelle.
Forma corpi di occlusione.
Porta alla morte della larva.
E utilizza il cadavere dell'ospite come fonte di nuove particelle infettive.
Ma la sua importanza va molto oltre la patologia dell'insetto.
CpGV è diventato un bioinsetticida.
È stato utilizzato per controllare la carpocapsa nei frutteti.
Ha dimostrato come un patogeno naturale possa diventare uno strumento dell'agricoltura.
E contemporaneamente ha dimostrato che l'evoluzione non può essere ignorata.
L'utilizzo prolungato di determinati isolati ha favorito la comparsa di popolazioni resistenti.
La ricerca ha quindi iniziato a sfruttare la stessa diversità genetica del virus per cercare nuovi ceppi capaci di superare le difese dell'insetto.
Si è creata una vera corsa agli armamenti.
La carpocapsa evolve.
Il virus evolve.
L'uomo modifica la pressione selettiva.
Nuovi genotipi vengono selezionati.
La popolazione dell'insetto risponde.
E il ciclo continua.
È proprio questo a rendere CpGV così interessante per l'entomologia.
Non è semplicemente "un virus che uccide una falena".
È un sistema evolutivo completo nel quale genetica, comportamento, fisiologia, ecologia, agricoltura e selezione naturale si incontrano.
Dal punto di vista microscopico abbiamo un genoma di circa 123 kilobasi che dirige una macchina molecolare estremamente sofisticata.
Dal punto di vista dell'insetto abbiamo una larva che cerca semplicemente di mangiare e crescere.
Dal punto di vista dell'agricoltore abbiamo un parassita delle colture da contenere.
Dal punto di vista evolutivo abbiamo due popolazioni biologiche sottoposte a pressione selettiva reciproca.
E dal punto di vista dell'entomologo abbiamo qualcosa di ancora più interessante: la possibilità di osservare l'evoluzione di un rapporto ospite-patogeno e contemporaneamente sfruttarlo per comprendere e modificare la dinamica di una popolazione di insetti.
CpGV dimostra quindi una delle regole fondamentali dell'entomologia moderna:
per controllare un insetto bisogna prima comprenderlo.
E per comprendere davvero un insetto bisogna considerare non soltanto l'animale, ma anche i virus, i parassiti, i microrganismi, le piante, l'ambiente e le forze evolutive che collegano tutti questi elementi.