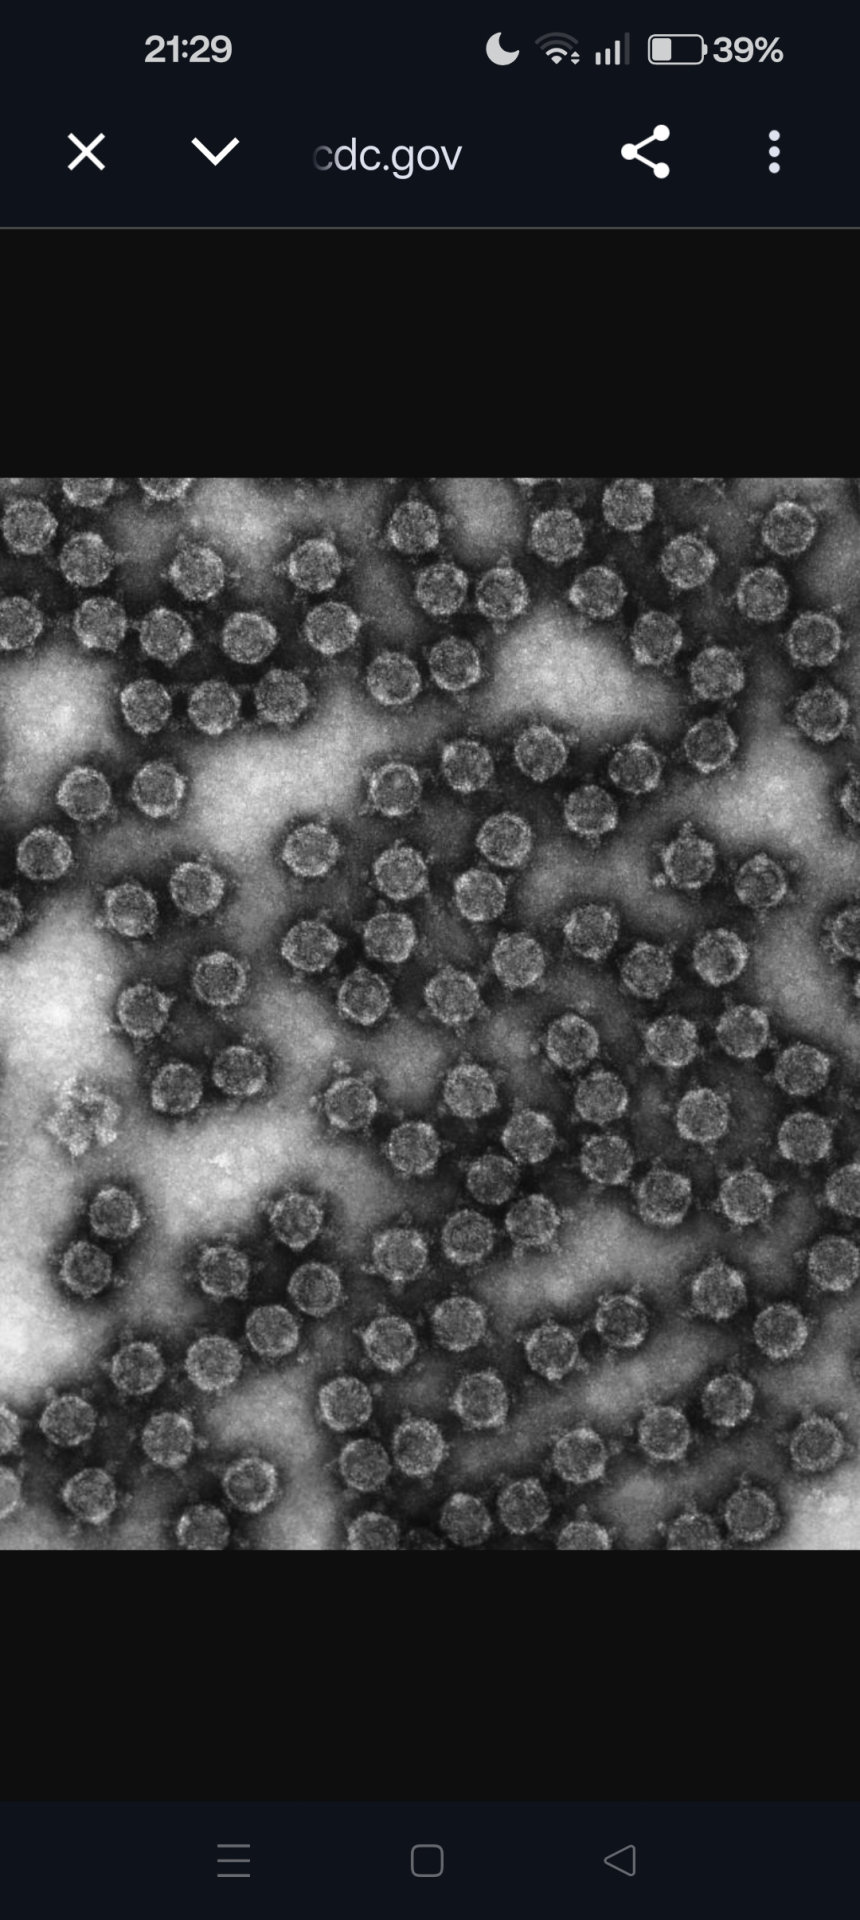
Il virus a RNA che trasforma l'intestino del baco da seta in una fabbrica virale
Il baco da seta è uno degli organismi più intimamente legati alla storia dell'agricoltura…
Bombyx mori cytoplasmic polyhedrosis virus: il virus a RNA che trasforma l'intestino del baco da seta in una fabbrica virale
Il baco da seta è uno degli organismi più intimamente legati alla storia dell'agricoltura umana.
Per secoli Bombyx mori è stato allevato per ottenere la seta, selezionato per produrre grandi quantità di fibra e mantenuto in condizioni che permettessero una crescita rapida e una produzione efficiente del bozzolo.
Ma proprio questa enorme importanza economica ha trasformato le malattie del baco da seta in un problema di grande rilevanza.
Tra i patogeni più importanti troviamo il Bombyx mori cytoplasmic polyhedrosis virus, abbreviato BmCPV.
Il nome contiene già una parte della sua storia biologica.
"Bombyx mori" identifica l'ospite principale.
"Cytoplasmic" indica che il ciclo replicativo avviene principalmente nel citoplasma delle cellule infette.
"Polyhedrosis" fa riferimento ai caratteristici corpi di occlusione poliedrici nei quali le particelle virali vengono protette nell'ambiente.
BmCPV appartiene al genere Cypovirus della famiglia Reoviridae ed è un virus a RNA a doppio filamento, o dsRNA.
Il suo genoma è particolarmente interessante perché non è costituito da una singola molecola di RNA, ma da dieci segmenti distinti, indicati da S1 a S10.
Questa caratteristica rende BmCPV profondamente diverso dal BmNPV analizzato nel capitolo precedente.
Qui non abbiamo un grande genoma di DNA che viene replicato nel nucleo.
Abbiamo invece un genoma segmentato di RNA a doppio filamento che viene mantenuto all'interno di strutture virali specializzate mentre il virus produce i propri RNA messaggeri.
Ed è proprio questa strategia a rendere BmCPV uno degli esempi più interessanti di patologia virale negli insetti.
Il posto di BmCPV nella classificazione dei virus
BmCPV appartiene ai cypovirus.
I cypovirus sono virus degli invertebrati caratterizzati generalmente da genomi a RNA a doppio filamento segmentati.
Molti di essi sono associati agli insetti, soprattutto ai lepidotteri.
La classificazione moderna dei cypovirus è stata progressivamente raffinata attraverso lo studio delle sequenze genomiche e delle caratteristiche delle particelle virali.
Storicamente, tuttavia, questi virus venivano spesso distinti attraverso il comportamento elettroforetico dei loro segmenti genomici.
Differenti virus producevano infatti differenti profili di migrazione dei segmenti di RNA.
Questi profili venivano definiti elettroferotipi.
La genomica moderna ha naturalmente permesso di andare molto oltre questo sistema.
Oggi possiamo confrontare direttamente le sequenze nucleotidiche e le proteine codificate.
Un virus senza involucro lipidico
A differenza di molti virus animali, BmCPV non possiede una membrana lipidica esterna.
La particella virale è costituita essenzialmente da un complesso proteico che racchiude il genoma.
Questa caratteristica è importante anche dal punto di vista della resistenza ambientale.
Un virus privo di envelope non dipende dalla stabilità di una membrana lipidica fragile.
La particella è quindi strutturalmente adatta a sopportare condizioni ambientali difficili.
La capsula proteica
La particella di BmCPV possiede una struttura capsidica organizzata.
All'interno del capsid si trova il genoma a RNA.
Questa organizzazione non è soltanto un sistema di protezione.
Il capsid partecipa direttamente al ciclo replicativo.
Ed è proprio qui che BmCPV diventa particolarmente interessante.
Il genoma segmentato
Il genoma di BmCPV è costituito da dieci segmenti di RNA a doppio filamento.
Sono indicati:
S1
S2
S3
S4
S5
S6
S7
S8
S9
S10.
I segmenti hanno dimensioni differenti e ciascuno contiene una regione codificante principale.
La segmentazione introduce una caratteristica evolutiva importantissima.
Il virus non possiede un'unica molecola genomica indivisibile.
Possiede invece un vero e proprio "pacchetto" di segmenti.
Questo sistema può avere conseguenze profonde sull'evoluzione virale.
Perché segmentare il genoma?
La segmentazione permette una notevole flessibilità evolutiva.
Quando virus compatibili infettano contemporaneamente una stessa cellula, i segmenti possono teoricamente partecipare a fenomeni di riassortimento.
Il riassortimento consiste nella formazione di progenie che possiedono combinazioni differenti di segmenti.
In un virus segmentato, quindi, l'evoluzione non deve dipendere esclusivamente dall'accumulo progressivo di mutazioni.
La combinazione dei segmenti rappresenta un'altra fonte di variabilità.
Le proteine strutturali
I diversi segmenti genomici codificano proteine differenti.
Tra le proteine strutturali troviamo VP1, VP2, VP3, VP4, VP6 e VP7.
Altri segmenti codificano proteine non strutturali, mentre il segmento S10 codifica la polyhedrin, una proteina fondamentale per la formazione dei corpi di occlusione.
Non si tratta quindi di dieci copie della stessa informazione.
Ogni segmento contribuisce a costruire una parte differente del sistema virale.
La RNA-dependent RNA polymerase
Uno dei componenti più importanti è la RNA-dependent RNA polymerase, abbreviata RdRp.
Un virus a RNA non può affidarsi alla normale macchina cellulare per replicare il proprio genoma nello stesso modo in cui farebbe una cellula.
Deve possedere o codificare strumenti capaci di sintetizzare RNA utilizzando RNA come stampo.
La RdRp svolge proprio questa funzione.
Nel caso di BmCPV, il segmento S2 codifica la principale RNA-dependent RNA polymerase virale.
Il problema fondamentale dei virus dsRNA
Il genoma a doppio filamento presenta un problema.
L'RNA a doppio filamento è una struttura che può essere riconosciuta dai sistemi di difesa dell'ospite.
Inoltre, per essere utilizzato come messaggio per produrre proteine, deve essere convertito in RNA a singolo filamento leggibile dai ribosomi.
BmCPV ha sviluppato una soluzione estremamente sofisticata.
La trascrizione può avvenire all'interno della particella virale.
La particella come fabbrica di RNA
Una caratteristica fondamentale dei cypovirus è che la trascrizione del genoma può avvenire all'interno del capsid.
La RdRp produce filamenti positivi di RNA.
Questi RNA possono funzionare come RNA messaggeri.
In questo modo il virus evita di esporre immediatamente il proprio dsRNA genomico all'ambiente citoplasmatico.
È una soluzione biologicamente elegante.
Il genoma resta protetto.
La macchina trascrizionale lavora all'interno.
Gli RNA prodotti vengono rilasciati nel citoplasma.
L'infezione inizia con il cibo
La trasmissione di BmCPV è principalmente fecale-orale.
La larva ingerisce materiale contaminato.
Questo è particolarmente importante negli allevamenti perché il baco da seta trascorre gran parte della propria vita alimentandosi.
Il virus sfrutta quindi uno dei comportamenti fondamentali dell'ospite.
Mangiare diventa il mezzo attraverso il quale il patogeno entra nell'organismo.
Il ruolo dei poliedri
I virioni non vengono semplicemente lasciati nell'ambiente.
Vengono inglobati in strutture cristalline chiamate poliedri.
Questi corpi sono costituiti principalmente da polyhedrin.
La polyhedrin forma una matrice estremamente resistente capace di proteggere le particelle virali.
I poliedri rappresentano quindi la forma ambientale del virus.
Una strategia apparentemente contraddittoria
Il virus deve affrontare due problemi completamente diversi.
Fuori dall'insetto deve essere resistente.
Dentro l'insetto deve invece essere rapidamente disponibile.
Il poliedro risolve entrambi.
Nell'ambiente protegge il virione.
Nel mesointestino della larva viene dissolto.
Il virus diventa nuovamente disponibile per infettare le cellule.
L'intestino come porta d'ingresso
Dopo l'ingestione, i poliedri raggiungono il mesointestino.
Qui incontrano un ambiente fortemente alcalino.
Le condizioni chimiche del tratto intestinale favoriscono la dissoluzione della matrice del poliedro.
I virioni vengono liberati.
Questo passaggio è fondamentale.
Il virus non deve rompere artificialmente il proprio involucro.
Sfrutta semplicemente la chimica fisiologica dell'ospite.
Una barriera che diventa una porta
L'intestino è normalmente una delle principali barriere contro i patogeni.
Nel caso di BmCPV, però, questa barriera viene trasformata in una porta d'ingresso.
Il virus entra con il cibo.
Raggiunge il lume intestinale.
Il poliedro si dissolve.
I virioni vengono liberati.
Le particelle entrano in contatto con l'epitelio.
È un esempio perfetto di come un patogeno possa evolvere sfruttando una funzione fisiologica dell'ospite.
Le cellule colonnari
BmCPV presenta un tropismo particolarmente marcato per le cellule epiteliali del mesointestino.
Le cellule colonnari rappresentano uno dei principali bersagli dell'infezione.
Questo tropismo è fondamentale.
Il virus non deve necessariamente invadere indiscriminatamente tutto l'organismo.
Può costruire il proprio ciclo biologico sfruttando soprattutto un tessuto specifico.
L'ingresso nella cellula
Per entrare nelle cellule, il virus deve interagire con componenti della membrana dell'ospite.
Diverse proteine virali sono state associate a questo processo.
La VP3, per esempio, possiede caratteristiche compatibili con un ruolo nell'interazione con la superficie cellulare.
Anche VP7 è stata collegata a interazioni con proteine dell'ospite coinvolte nell'ingresso virale.
L'endocitosi
Gli studi sul ciclo di BmCPV hanno indicato il coinvolgimento di meccanismi di endocitosi.
La cellula può inglobare la particella attraverso una vescicola.
Il virus viene così portato all'interno.
La membrana cellulare, che dovrebbe proteggere l'insetto dall'ambiente esterno, diventa indirettamente uno strumento utilizzato dal virus.
L'arrivo nel citoplasma
Una volta completate le fasi necessarie all'ingresso, il virus raggiunge il citoplasma.
Ed è qui che BmCPV si differenzia radicalmente dal BmNPV.
Il centro operativo dell'infezione non è il nucleo.
È il citoplasma.
Perché il nome "cytoplasmic polyhedrosis"
Il nome storico deriva proprio da questa caratteristica.
Le inclusioni virali e la replicazione sono associate al citoplasma delle cellule del mesointestino.
I poliedri si formano nelle cellule infette.
Le particelle virali vengono progressivamente accumulate e incorporate nelle strutture di occlusione.
La fabbrica citoplasmatica
Una cellula infettata da BmCPV viene progressivamente trasformata.
Il virus produce RNA.
Produce proteine.
Replica il proprio genoma.
Costruisce nuove particelle.
Forma poliedri.
La cellula diventa quindi una fabbrica virale.
Ma non una fabbrica qualunque.
È una fabbrica organizzata intorno a un genoma segmentato.
La trascrizione
Il ciclo replicativo inizia con la produzione di RNA positivi.
Questi RNA possono essere utilizzati direttamente come messaggeri.
I ribosomi della cellula traducono le proteine virali.
Tra queste ci sono proteine necessarie alla replicazione e alla costruzione delle particelle.
Il cappuccio degli RNA
Gli RNA messaggeri virali devono essere riconosciuti e utilizzati efficientemente dal sistema di traduzione dell'ospite.
Le proteine virali associate al capsid partecipano alla produzione e alla modificazione degli RNA.
VP4, per esempio, possiede attività enzimatiche associate alla guanililazione e alla metilazione degli RNA virali, contribuendo alla formazione dei cappucci degli RNA messaggeri.
La traduzione
Gli RNA virali vengono tradotti dai ribosomi dell'insetto.
La cellula non viene semplicemente "spenta".
La sua macchina biosintetica viene progressivamente indirizzata verso le necessità del virus.
Questo rappresenta uno dei grandi principi della virologia.
Il virus non porta con sé una cellula.
Porta un programma genetico capace di sfruttare una cellula già esistente.
La replicazione del genoma
Una volta prodotte le proteine necessarie, il virus può iniziare la replicazione dei propri segmenti genomici.
La RdRp sintetizza nuovi RNA.
Questi RNA vengono progressivamente associati alle strutture capsidiche.
All'interno delle nuove particelle vengono prodotti i filamenti complementari.
Si ricostituisce così il genoma a doppio filamento.
Il problema dell'impacchettamento
Un virus segmentato deve risolvere un problema particolare.
Non basta produrre grandi quantità di RNA.
Le particelle progenie devono ricevere una combinazione completa dei segmenti necessari.
La selezione e l'impacchettamento dei segmenti sono processi complessi e non sono ancora completamente chiariti per i cypovirus.
Questo rappresenta una delle domande più interessanti della biologia di BmCPV.
Come fa il virus a sapere quali segmenti inserire?
È una domanda apparentemente semplice.
Se esistono dieci segmenti differenti, come viene garantito che una particella riceva il necessario corredo genomico?
Devono esistere segnali molecolari che permettono il riconoscimento e l'organizzazione dei segmenti.
La precisa modalità con cui questo processo viene coordinato rimane un importante tema di ricerca nei cypovirus.
I viroplasmi
Durante l'infezione possono formarsi nel citoplasma strutture specializzate chiamate viroplasmi o stroma virogenico.
Queste strutture concentrano proteine virali e particelle.
Creano quindi una sorta di microambiente favorevole alla replicazione e all'assemblaggio.
Il concetto è estremamente interessante perché dimostra che il virus non sfrutta il citoplasma in maniera casuale.
Lo riorganizza.
Riorganizzare la cellula
La cellula infetta cambia architettura.
Il citoplasma diventa progressivamente occupato da strutture virali.
Proteine.
RNA.
Capsidi.
Particelle immature.
Particelle mature.
Poliedri.
Tutto viene progressivamente organizzato intorno alla produzione virale.
La formazione dei poliedri
La polyhedrin viene prodotta in quantità molto elevate nelle fasi avanzate dell'infezione.
Questa proteina forma una matrice cristallina nella quale vengono incorporate le particelle virali.
Il risultato finale è il poliedro.
I poliedri rappresentano una delle caratteristiche più spettacolari dell'infezione da BmCPV.
Un cristallo pieno di virus
Possiamo immaginare il poliedro come un cristallo biologico.
Non è semplicemente una struttura cellulare.
È una matrice proteica costruita dal virus per imprigionare e proteggere moltissimi virioni.
Questa strategia permette al virus di attraversare il periodo che separa la morte di un ospite dall'infezione del successivo.
La resistenza ambientale
Fuori dalla larva il virus deve affrontare:
disidratazione;
variazioni di temperatura;
radiazione;
agenti chimici;
degradazione biologica;
competizione con altri microrganismi.
La matrice del poliedro aumenta enormemente la protezione.
È una delle ragioni per cui la trasmissione ambientale può essere così efficace.
La lisi delle cellule
Quando il ciclo replicativo raggiunge le fasi avanzate, le cellule infette possono andare incontro a danni progressivi e lisi.
I poliedri vengono liberati.
Raggiungono il lume intestinale.
Vengono eliminati con le feci.
L'ambiente viene contaminato.
Una nuova larva può ingerire il materiale.
Il ciclo riparte.
La trasmissione fecale-orale
La trasmissione fecale-orale è quindi perfettamente coerente con la biologia dell'insetto.
La larva mangia.
Il virus entra.
Il virus replica.
La cellula muore.
Le particelle vengono eliminate.
Un'altra larva mangia.
Il processo ricomincia.
È un ciclo estremamente efficiente.
La malattia
L'infezione provoca la cytoplasmic polyhedrosis disease.
Le larve infette possono mostrare:
riduzione della crescita;
dimagrimento;
letargia;
riduzione dell'attività alimentare;
alterazioni del tratto intestinale;
caratteristiche rughe o aree biancastre nel mesointestino.
Le manifestazioni cliniche sono il risultato del progressivo danneggiamento dell'epitelio intestinale.
L'intestino non è soltanto un tubo
Per comprendere la malattia bisogna ricordare che il mesointestino è uno degli organi più importanti dell'insetto.
È coinvolto nella digestione.
Nell'assorbimento dei nutrienti.
Nella regolazione fisiologica.
Nella barriera contro i microrganismi.
Quando il virus distrugge o altera le cellule epiteliali, non sta semplicemente danneggiando un tessuto.
Sta colpendo uno dei principali centri metabolici della larva.
Il rallentamento della crescita
Una larva infetta può non riuscire a utilizzare correttamente il cibo.
La digestione e l'assorbimento vengono compromessi.
L'energia disponibile diminuisce.
La crescita rallenta.
La larva può diventare progressivamente emaciata.
Questa conseguenza è particolarmente importante nella sericoltura.
Il rapporto tra intestino e immunità
Il mesointestino è anche una struttura immunologica.
Non è una barriera passiva.
Le cellule intestinali possiedono sistemi capaci di riconoscere e reagire alla presenza di agenti patogeni.
BmCPV deve quindi affrontare un ambiente nel quale l'insetto possiede difese specifiche.
RNA interference
Uno dei meccanismi più interessanti è l'RNA interference.
L'infezione da BmCPV può generare piccoli RNA virali associati alla risposta RNAi dell'ospite.
Questi piccoli RNA possono derivare dal dsRNA virale e contribuire al riconoscimento e alla repressione del virus.
Una guerra di RNA
Qui si crea un confronto estremamente elegante.
Il virus porta RNA a doppio filamento.
L'ospite riconosce RNA virale.
Produce piccoli RNA.
Questi possono guidare complessi cellulari verso sequenze virali.
Il virus, però, non rimane necessariamente passivo.
Può interferire con la risposta dell'ospite.
Il risultato è una vera guerra molecolare combattuta attraverso molecole di RNA.
NSP8 e l'RNA interference
Uno studio ha mostrato che la proteina virale NSP8 può interagire con BmAgo2, una componente importante della macchina RNAi, e che questa interazione può ridurre l'efficienza della risposta antivirale favorendo la proliferazione di BmCPV.
Questo è un esempio particolarmente interessante di antagonismo immunitario.
L'insetto possiede una difesa.
Il virus ha sviluppato una maniera per interferire con essa.
Il ruolo dei microRNA
Anche i microRNA dell'ospite possono essere coinvolti nell'infezione.
I microRNA sono piccole molecole di RNA regolatorio capaci di modulare l'espressione dei geni.
Durante l'infezione da BmCPV il profilo dei piccoli RNA può cambiare.
Questo suggerisce che l'infezione non rappresenti soltanto una replicazione virale.
È anche una profonda riorganizzazione dell'espressione genica dell'ospite.
Il virus modifica l'ospite
Durante l'infezione cambiano i programmi cellulari.
Cambiano i geni immunitari.
Cambiano i processi metabolici.
Cambiano le risposte allo stress.
Cambiano i sistemi di morte cellulare.
La cellula infetta non è quindi semplicemente "piena di virus".
È biologicamente diversa da una cellula sana.
Una scoperta recente: la diversità cellulare del mesointestino
Le tecniche moderne permettono oggi di osservare il mesointestino con una risoluzione molto superiore rispetto al passato.
Uno studio pubblicato nel 2024 ha utilizzato il single-nucleus RNA sequencing per analizzare le popolazioni cellulari del mesointestino durante l'infezione da BmCPV. Sono state identificate diverse popolazioni cellulari e sono emerse differenze significative nelle risposte all'infezione.
Una scoperta particolarmente interessante
Lo studio ha indicato che l'infezione può sopprimere alcune risposte antivirali e aumentare l'espressione di BmHSP70, una proteina associata alla risposta allo stress che sembra favorire la replicazione di BmCPV.
Contemporaneamente, alcuni geni immunitari vengono attivati.
Un esempio è BmLebocin3.
La riduzione sperimentale di BmLEB3 tramite RNA interference ha favorito la replicazione del virus.
Questo significa che durante l'infezione possono coesistere due fenomeni apparentemente opposti:
evasione immunitaria del virus;
resistenza attiva dell'ospite.
L'infezione non è uniforme
Questo risultato porta a una conclusione importante.
Il mesointestino non è un tessuto costituito da cellule tutte identiche.
Esistono popolazioni cellulari differenti.
Alcune possono essere più permissive.
Altre possono rispondere più efficacemente.
Alcune possono contribuire alla difesa.
Altre possono essere sfruttate dal virus.
L'infezione diventa quindi un fenomeno cellulare molto più complesso di quanto si pensasse.
Metabolismo e virus
Un virus non può replicarsi senza risorse.
Ha bisogno di nucleotidi.
Proteine.
Lipidi.
Energia.
Membrane.
La cellula ospite possiede tutte queste risorse.
Il virus deve quindi modificare il metabolismo per creare condizioni favorevoli alla propria replicazione.
Un'altra scoperta recente
Una ricerca pubblicata nel 2026 ha identificato Tudor staphylococcal nuclease (TSN) come un importante fattore dell'ospite che favorisce la replicazione di BmCPV.
Lo studio collega TSN alla regolazione del metabolismo lipidico e a un asse BmTSN–BmSREBP1 associato alla replicazione virale.
È un risultato importante perché mostra come il virus possa dipendere da normali processi metabolici dell'insetto.
Il virus non porta tutto da casa
Questo è un concetto fondamentale della virologia.
Un virus possiede il proprio genoma.
Ma non possiede una cellula completa.
Deve quindi sfruttare proteine e processi dell'ospite.
BmCPV non è un'entità completamente autonoma.
È un parassita molecolare.
La sua sopravvivenza dipende dalla capacità di appropriarsi della macchina biologica dell'insetto.
La competizione per le risorse
Quando il virus replica rapidamente, sottrae risorse alla cellula.
RNA.
Nucleotidi.
Amminoacidi.
Lipidi.
Energia.
La cellula deve quindi sostenere contemporaneamente le proprie esigenze e quelle del virus.
Alla fine, il sistema può collassare.
Il danno all'intestino
Il danno intestinale spiega buona parte dei sintomi.
Le cellule vengono infettate.
La loro funzione viene alterata.
La struttura del tessuto cambia.
L'assorbimento dei nutrienti viene compromesso.
La larva perde efficienza metabolica.
La crescita rallenta.
L'organismo diventa progressivamente debilitato.
Perché il baco dimagrisce?
Non è semplicemente perché "mangia meno".
L'infezione può alterare contemporaneamente:
assunzione del cibo;
digestione;
assorbimento;
metabolismo;
utilizzo dei nutrienti;
regolazione ormonale.
Il dimagrimento è quindi il risultato di una perturbazione sistemica originata da un'infezione che inizialmente è fortemente concentrata nell'intestino.
La specificità del tropismo
BmCPV è un ottimo esempio di tropismo virale.
Il virus non deve necessariamente infettare ogni cellula dell'organismo.
Ha sviluppato una forte relazione con un tessuto specifico.
Questo può rappresentare un vantaggio.
L'intestino è continuamente esposto all'ambiente esterno.
È quindi un punto di ingresso naturale.
Il vantaggio evolutivo del mesointestino
Per un virus trasmesso per via alimentare, il mesointestino è un bersaglio ideale.
Il virus entra direttamente nel suo ambiente di riferimento.
Non deve attraversare inizialmente pelle e tessuti profondi.
Deve semplicemente sopravvivere abbastanza a lungo da raggiungere le cellule suscettibili.
Il poliedro risolve il primo problema.
Il tropismo cellulare risolve il secondo.
La trasmissione nell'allevamento
Negli allevamenti di bachi da seta il problema può diventare particolarmente serio.
Molte larve condividono lo stesso materiale vegetale.
Le feci possono contaminare l'ambiente.
Il virus viene eliminato insieme al materiale fecale.
Le larve continuano ad alimentarsi.
La trasmissione può quindi creare un ciclo estremamente efficiente.
La densità degli ospiti
Come già osservato per BmNPV, la densità rappresenta un fattore epidemiologico importante.
Più individui sono vicini.
Più facilmente il materiale contaminato può raggiungere nuovi ospiti.
La sericoltura crea quindi condizioni nelle quali la trasmissione di patogeni può diventare particolarmente rapida.
Il controllo della malattia
Non esiste una semplice "cura antivirale" universalmente risolutiva per la malattia da BmCPV.
La prevenzione rimane quindi fondamentale.
Riduzione della contaminazione.
Igiene.
Gestione corretta dell'allevamento.
Monitoraggio.
Selezione di linee più resistenti.
Diagnosi precoce.
Sono tutti elementi importanti della gestione sanitaria.
La diagnosi molecolare
L'identificazione del virus può essere effettuata utilizzando metodiche molecolari.
La PCR può individuare sequenze specifiche.
L'analisi dei segmenti genomici può distinguere differenti ceppi.
Il sequenziamento permette una caratterizzazione molto più precisa.
La diagnostica moderna può quindi superare la semplice osservazione dei sintomi.
La differenza con BmNPV
Il confronto con l'articolo precedente è fondamentale.
BmNPV:
DNA a doppio filamento;
famiglia Baculoviridae;
replicazione principalmente associata al nucleo;
grande genoma circolare;
infezione sistemica caratteristica.
BmCPV:
RNA a doppio filamento;
famiglia Reoviridae;
genoma segmentato;
replicazione principalmente citoplasmatica;
forte tropismo per il mesointestino.
Due virus.
Un solo ospite.
Strategie completamente differenti.
Lo stesso baco, due guerre diverse
Il caso di Bombyx mori è quindi straordinariamente istruttivo.
BmNPV e BmCPV non appartengono semplicemente a famiglie differenti.
Rappresentano due filosofie biologiche differenti.
Uno sfrutta un genoma a DNA.
L'altro un genoma a RNA segmentato.
Uno utilizza profondamente le funzioni nucleari della cellula.
L'altro costruisce il proprio centro operativo nel citoplasma.
Eppure entrambi hanno trovato il modo di sfruttare lo stesso insetto.
La segmentazione come arma evolutiva
Il genoma segmentato offre al virus una caratteristica che un genoma non segmentato non possiede nello stesso modo.
La possibilità di riassortimento può creare nuove combinazioni genetiche quando si verificano coinfezioni compatibili.
Questo significa che la variabilità virale può essere prodotta non soltanto attraverso mutazioni.
Può anche derivare dalla combinazione dei segmenti.
Il problema del riassortimento
Naturalmente il riassortimento non è automaticamente vantaggioso.
Una nuova combinazione può essere:
neutra;
vantaggiosa;
svantaggiosa;
addirittura incompatibile.
La segmentazione rappresenta quindi una fonte di possibilità evolutive, non una garanzia di successo.
Le proteine virali come strumenti multifunzionali
Una singola proteina virale può svolgere più funzioni.
Può partecipare alla struttura del virione.
Può interagire con proteine dell'ospite.
Può contribuire all'ingresso cellulare.
Può influenzare la risposta immunitaria.
Questo è particolarmente evidente nel caso delle proteine strutturali di BmCPV.
La struttura della particella e il processo di infezione sono strettamente collegati.
VP7
VP7 è una delle proteine più studiate.
La sua espressione è stata collegata alla replicazione del virus e sono stati identificati diversi prodotti proteici associati al segmento S7.
Esperimenti di RNA interference hanno mostrato che ridurre l'espressione di vp7 può diminuire la replicazione virale.
Questo suggerisce che una proteina apparentemente "strutturale" possa avere funzioni più complesse.
NSP8
NSP8 rappresenta un altro esempio.
Non è una semplice componente del virione.
Può interagire con la macchina RNAi dell'ospite.
La sua interazione con BmAgo2 può favorire la replicazione virale.
Questo mostra come le proteine non strutturali possano diventare veri strumenti di manipolazione dell'ospite.
NSP9
Anche NSP9 è stata studiata per il suo possibile coinvolgimento nella regolazione dell'RNA virale.
Le prime ricerche sul segmento S9 hanno mostrato un'espressione precoce della proteina NS5 e la sua capacità di legare RNA a doppio filamento, suggerendo un ruolo nella regolazione delle funzioni genomiche virali.
Il virus come sistema regolato
Più si studia BmCPV, più diventa evidente che il virus non è una semplice sequenza di RNA.
È un sistema organizzato.
I segmenti interagiscono.
Le proteine cooperano.
La replicazione avviene in strutture specializzate.
L'ospite viene manipolato.
La risposta immunitaria viene contrastata.
I poliedri vengono prodotti al momento opportuno.
Il paradosso della polyhedrin
La polyhedrin non è necessaria per tutte le funzioni intracellulari della replicazione.
È soprattutto fondamentale per la formazione della struttura protettiva ambientale.
Esperimenti con BmCPV ricombinante hanno mostrato che il virus può replicarsi anche senza il segmento associato alla polyhedrin in determinate condizioni sperimentali.
Questo permette di separare concettualmente due funzioni:
replicarsi dentro l'ospite;
sopravvivere fuori dall'ospite.
Dentro e fuori
Dentro la cellula il virus deve essere efficiente.
Fuori dalla cellula deve essere resistente.
Sono problemi biologici opposti.
La soluzione consiste nell'utilizzare strutture e strategie differenti nelle due fasi.
La particella virale attiva deve poter interagire con la cellula.
Il poliedro deve invece essere estremamente resistente.
Un ciclo biologico elegante
Il ciclo può essere riassunto così:
ingestione;
dissoluzione del poliedro;
rilascio dei virioni;
ingresso nelle cellule intestinali;
trascrizione;
traduzione;
replicazione;
assemblaggio;
formazione dei poliedri;
lisi cellulare;
eliminazione con le feci;
nuova ingestione.
È un ciclo quasi perfettamente chiuso.
Perché la malattia è così difficile da controllare
Il virus possiede una forma ambientale molto resistente.
L'ospite continua ad alimentarsi.
Il materiale contaminato può rimanere nell'ambiente.
Le larve sono numerose.
La diagnosi precoce può essere difficile.
La combinazione di questi fattori rende il controllo epidemiologico complesso.
La resistenza dell'ospite
Come per BmNPV, anche nel caso di BmCPV la genetica dell'ospite rappresenta un campo di ricerca importante.
Differenti linee di Bombyx mori possono mostrare differenti livelli di suscettibilità.
La comprensione dei geni coinvolti potrebbe permettere di selezionare linee più resistenti.
La selezione artificiale
L'uomo ha già selezionato Bombyx mori per moltissime generazioni.
Inserire la resistenza ai virus tra i criteri di selezione rappresenta una naturale evoluzione della sericoltura moderna.
L'obiettivo non sarebbe semplicemente avere bachi resistenti.
Sarebbe ottenere bachi resistenti che mantengano una produzione elevata di seta.
BmCPV e biotecnologia
Anche BmCPV può essere studiato come piattaforma biotecnologica.
Sistemi ricombinanti sono stati sviluppati per produrre virus modificati capaci di esprimere geni estranei.
Questo apre prospettive interessanti per lo studio della funzione dei geni virali e per l'utilizzo del sistema nella produzione di molecole biologiche.
Un virus come strumento sperimentale
La possibilità di costruire BmCPV ricombinante permette di fare una cosa fondamentale.
Non limitarsi a osservare ciò che accade.
Si può modificare il sistema.
Si può eliminare un gene.
Si può inserire una sequenza.
Si può osservare il risultato.
Questo trasforma il virus da semplice oggetto di osservazione a vero sistema sperimentale.
Il futuro della ricerca
La ricerca su BmCPV sta entrando in una fase particolarmente interessante.
Le tecniche di single-cell e single-nucleus sequencing stanno permettendo di osservare la risposta dell'ospite con una risoluzione mai raggiunta prima.
La genomica permette di confrontare ceppi.
L'RNA sequencing permette di osservare le risposte cellulari.
L'RNA interference permette di testare la funzione dei geni.
L'editing genomico permette di modificare l'ospite.
Le tecniche di ricostruzione virale permettono di modificare il virus.
Il sistema BmCPV–Bombyx mori è quindi diventato un laboratorio naturale della virologia degli insetti.
Una frontiera particolarmente interessante
La domanda più interessante non è più soltanto:
"Come uccide BmCPV il baco da seta?"
La domanda moderna è molto più complessa:
"Come interagiscono contemporaneamente virus, metabolismo, immunità, RNA regolatori, architettura cellulare e genetica dell'ospite?"
È qui che l'entomologia incontra la biologia molecolare.
Conclusione
BmCPV rappresenta uno dei più affascinanti esempi di interazione tra virus e insetto.
È piccolo rispetto all'organismo che infetta.
Ma possiede una complessità straordinaria.
Il suo genoma è segmentato in dieci molecole di RNA.
Le sue proteine costruiscono una particella altamente organizzata.
I suoi virioni vengono protetti all'interno di poliedri.
Il virus entra nell'organismo attraverso il cibo.
Sfrutta l'ambiente alcalino del mesointestino per liberarsi dalla propria matrice protettiva.
Riconosce le cellule dell'epitelio intestinale.
Entra nel citoplasma.
Trasforma la cellula in una fabbrica.
Produce RNA.
Produce proteine.
Replica il proprio genoma.
Costruisce nuovi virioni.
Forma nuovi poliedri.
E infine utilizza la morte cellulare e l'eliminazione fecale per raggiungere il prossimo ospite.
Ma la storia non è unidirezionale.
Il baco da seta reagisce.
L'RNA interference riconosce materiale virale.
I geni immunitari vengono modulati.
Le cellule intestinali cambiano il proprio comportamento.
Il metabolismo viene riorganizzato.
Il virus cerca di sopprimere queste difese.
L'ospite cerca di limitarne la replicazione.
Ne nasce una vera competizione molecolare.
Il caso di BmCPV dimostra inoltre quanto sia riduttivo descrivere un virus semplicemente come un agente che "uccide l'insetto".
BmCPV modifica il metabolismo.
Modifica l'espressione genica.
Riorganizza il citoplasma.
Interagisce con le proteine dell'ospite.
Manipola la risposta immunitaria.
Sfrutta l'apparato digerente.
E costruisce strutture extracellulari capaci di proteggere la propria progenie.
È quindi contemporaneamente un patogeno, un parassita molecolare e un sistema biologico estremamente sofisticato.
E il confronto con BmNPV rende il quadro ancora più interessante.
Due virus infettano lo stesso baco da seta.
Uno possiede un genoma a DNA.
L'altro un genoma a RNA segmentato.
Uno è associato soprattutto al nucleo.
L'altro al citoplasma.
Uno appartiene ai baculovirus.
L'altro ai cypovirus.
Eppure entrambi hanno trovato una soluzione evolutiva allo stesso problema fondamentale:
come trasformare una cellula di Bombyx mori in una macchina capace di produrre virus.
Questa è forse la lezione più interessante di BmCPV.
L'evoluzione non ha prodotto una sola maniera di sfruttare un insetto.
Ha prodotto una quantità enorme di strategie.
E il baco da seta, proprio perché è stato studiato per secoli dall'uomo, permette oggi di osservare alcune di queste strategie con un livello di dettaglio straordinario.
Dal punto di vista dell'entomologia, BmCPV è quindi molto più di una malattia della sericoltura.
È una finestra aperta sulla relazione tra:
insetto, intestino, virus, RNA, immunità, metabolismo ed evoluzione.
E proprio nell'intestino del baco da seta possiamo osservare una delle più sofisticate battaglie biologiche esistenti tra un ospite e il suo parassita molecolare.