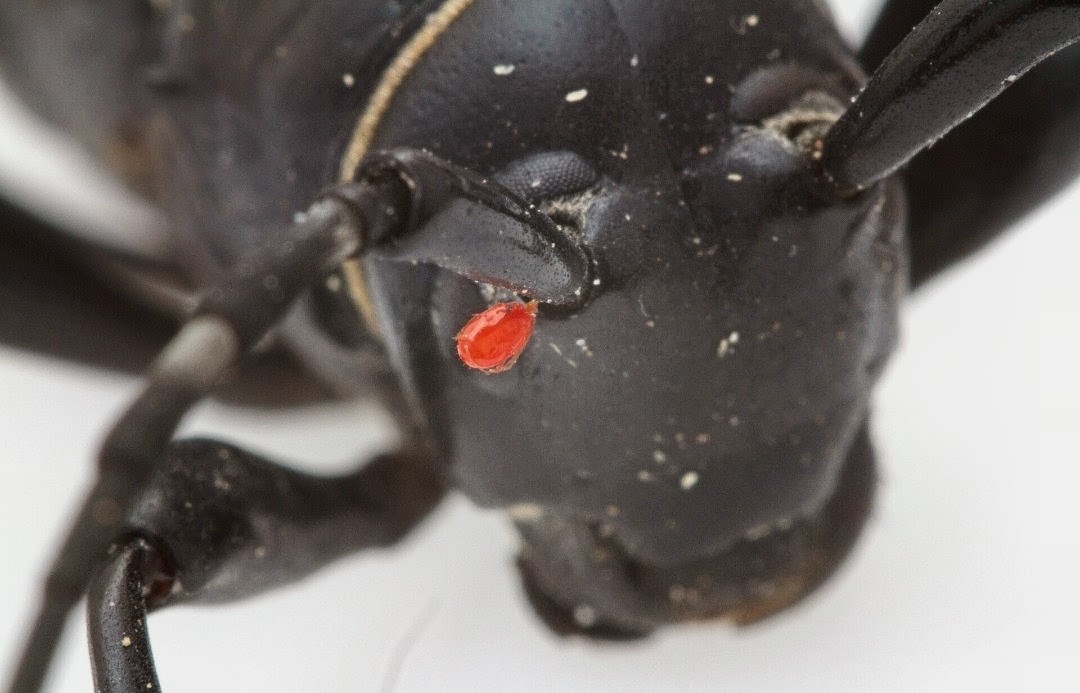
ectosimbionti degli insetti
Gli insetti non vivono quasi mai in isolamento biologico. La loro superficie corporea costituisce un ambiente ecologico vero e proprio, caratterizzato da temperatura, umidità, disponibilità di nutrienti, caratteristiche chimiche e…
La diversità degli ectosimbionti degli insetti
Gli insetti non vivono quasi mai in isolamento biologico. La loro superficie corporea costituisce un ambiente ecologico vero e proprio, caratterizzato da temperatura, umidità, disponibilità di nutrienti, caratteristiche chimiche e opportunità di dispersione. Su questa superficie possono stabilirsi organismi appartenenti a gruppi tassonomici estremamente differenti, dando origine ad associazioni che spaziano dal parassitismo stretto alla semplice foresia, dal commensalismo al mutualismo. L'insieme di queste relazioni costituisce uno degli aspetti più interessanti dell'ecologia degli artropodi.
Il termine ectosimbionte indica, in senso ampio, un organismo che vive associato esternamente alla superficie di un altro organismo, detto ospite. Nel caso degli insetti, l'ectosimbionte può utilizzare il corpo dell'ospite come substrato, rifugio, mezzo di trasporto, fonte alimentare oppure come ambiente nel quale completare una parte del proprio ciclo biologico.
Questa definizione comprende fenomeni biologici molto diversi. Un acaro che si alimenta dell'emolinfa dell'ospite esercita una relazione profondamente diversa da quella di un organismo che utilizza semplicemente l'insetto come mezzo di trasporto. Analogamente, un microrganismo presente sulla cuticola può avere un ruolo neutrale, contribuire alla difesa dell'ospite oppure diventare patogeno in determinate condizioni.
La diversità degli ectosimbionti non rappresenta quindi soltanto una diversità di specie. È soprattutto una diversità di strategie ecologiche, di adattamenti morfologici e fisiologici e di modalità attraverso le quali un organismo sfrutta la presenza di un altro.
Il corpo dell'insetto come microhabitat
La superficie di un insetto costituisce un microhabitat particolarmente complesso. La cuticola non è una semplice barriera passiva, ma una struttura dinamica composta da differenti strati e caratterizzata da proprietà fisiche e chimiche specifiche.
La presenza di cere epicuticolari, idrocarburi cuticolari, proteine, composti volatili e altre sostanze crea una superficie con caratteristiche molto differenti rispetto all'ambiente circostante. Inoltre, la conformazione del corpo produce numerosi microambienti.
Le articolazioni, le regioni intersegmentali, la base delle zampe, le cavità toraciche esterne, l'area intorno agli apparati boccali, le inserzioni delle ali e le strutture tegumentali specializzate possono offrire condizioni particolarmente favorevoli alla permanenza di piccoli organismi.
Un ectosimbionte sufficientemente piccolo può quindi vivere in un ambiente che, dal punto di vista delle sue dimensioni, equivale a un vero paesaggio.
La superficie corporea dell'ospite può inoltre essere soggetta a variazioni microclimatiche molto inferiori rispetto a quelle dell'ambiente macroscopico. Una cavità nella cuticola può conservare una maggiore umidità rispetto all'aria circostante; una regione protetta dalle appendici può offrire riparo dalle correnti d'aria; una zona particolarmente ricca di secrezioni può rappresentare una fonte alimentare.
Da questo punto di vista, l'insetto può essere considerato un ecosistema in miniatura, nel quale diversi organismi interagiscono tra loro e con l'ospite.
La cuticola come barriera e come superficie colonizzabile
La cuticola degli insetti svolge una funzione fondamentale nella protezione dall'ambiente esterno. Essa limita la perdita d'acqua, protegge dai danni meccanici e costituisce una delle principali barriere contro microrganismi e organismi parassiti.
Proprio questa funzione difensiva rende particolarmente sofisticati gli adattamenti necessari per vivere sulla superficie dell'insetto.
Un organismo ectosimbionte deve infatti riuscire a mantenere il contatto con l'ospite senza essere facilmente rimosso durante il movimento, la pulizia del corpo, la muta o il contatto con il substrato.
Nel corso dell'evoluzione sono comparsi numerosi adattamenti destinati a risolvere questo problema. Alcuni piccoli artropodi possiedono strutture uncinate, ventose, setole specializzate o superfici corporee conformate per aderire alla cuticola dell'ospite.
Altri non rimangono permanentemente fissati, ma sfruttano l'ospite soltanto temporaneamente.
La relazione ectosimbiotica può quindi essere estremamente stabile oppure caratterizzata da contatti brevissimi e ripetuti.
Ectosimbiosi e parassitismo
Una delle forme più evidenti di associazione esterna è il parassitismo.
Gli ectoparassiti dipendono dall'ospite per ottenere risorse necessarie alla sopravvivenza o alla riproduzione. Nel caso degli insetti, possono nutrirsi di sangue, emolinfa, tessuti, secrezioni o materiale presente sulla superficie corporea.
Il parassitismo rappresenta una relazione nella quale il beneficio dell'ectosimbionte è associato a un costo per l'ospite. Tuttavia, il grado di danno può variare enormemente.
Un ectoparassita altamente specializzato può sviluppare una relazione relativamente stabile con l'ospite, mentre un organismo opportunista può sfruttarlo soltanto occasionalmente.
La distinzione tra ectosimbiosi e parassitismo deve quindi essere effettuata con attenzione. Il termine ectosimbionte descrive principalmente la posizione e l'associazione, mentre il termine parassita descrive la natura della relazione biologica.
Non tutti gli ectosimbionti sono parassiti.
Questa distinzione è fondamentale per comprendere la reale diversità delle associazioni presenti sulla superficie degli insetti.
Gli acari come ectosimbionti degli insetti
Gli acari rappresentano probabilmente uno degli esempi più spettacolari della diversificazione degli ectosimbionti associati agli insetti.
Le loro dimensioni ridotte permettono loro di colonizzare regioni del corpo difficilmente accessibili ad altri organismi. Alcune specie sono associate a particolari gruppi di insetti per periodi molto lunghi, mentre altre utilizzano l'ospite soprattutto per disperdersi.
La relazione può assumere forme estremamente differenti.
Alcuni acari sono veri ectoparassiti e ricavano direttamente dall'insetto le risorse necessarie. Altri sono predatori di piccoli organismi presenti sulla superficie dell'ospite. Altri ancora sfruttano residui organici, microrganismi o materiali presenti nell'ambiente associato all'insetto.
Questa varietà dimostra come la stessa superficie corporea possa sostenere gilde ecologiche differenti.
Particolarmente interessante è il fenomeno della foresia.
La foresia: l'ospite come mezzo di trasporto
La foresia è una relazione nella quale un organismo utilizza un altro organismo principalmente come mezzo di trasporto.
Nel caso degli insetti, un piccolo artropode può aggrapparsi al corpo di un insetto volante e lasciarsi trasportare verso un nuovo ambiente.
Il vantaggio per il foresico è evidente: un organismo di dimensioni estremamente ridotte può raggiungere rapidamente habitat che altrimenti sarebbero difficili o impossibili da colonizzare.
L'insetto, almeno in una relazione propriamente foresica, non rappresenta necessariamente una fonte alimentare.
Questo meccanismo è particolarmente importante negli ambienti caratterizzati da risorse distribuite in modo discontinuo. Un piccolo organismo che vive in un ambiente temporaneo può sfruttare un insetto mobile per raggiungere un nuovo habitat quando quello precedente diventa inadatto.
La foresia dimostra quindi che l'ectosimbiosi non implica necessariamente nutrizione.
L'ospite può essere semplicemente un veicolo biologico.
Adattamenti morfologici alla vita sull'ospite
La vita sulla superficie di un insetto pone problemi meccanici notevoli.
Un organismo di piccole dimensioni deve resistere alle accelerazioni provocate dal volo, alle vibrazioni, al vento e ai continui movimenti dell'ospite.
Di conseguenza, gli ectosimbionti possono presentare adattamenti morfologici estremamente specializzati.
Corpi appiattiti, zampe modificate, uncini, ventose e strutture di presa permettono di mantenere il contatto con l'ospite.
In alcuni casi la morfologia dell'ectosimbionte appare quasi modellata dal corpo dell'ospite.
Questa specializzazione può raggiungere livelli tali da rendere l'identificazione dell'ospite fondamentale per comprendere la biologia dell'ectosimbionte.
La specificità dell'ospite
Uno degli aspetti più interessanti dell'ectosimbiosi è il grado di specificità.
Alcuni ectosimbionti sono generalisti e possono utilizzare numerose specie di insetti. Altri mostrano invece una forte associazione con un singolo ospite o con un gruppo tassonomicamente ristretto.
La specificità può derivare da diversi fattori.
L'ectosimbionte può riconoscere particolari segnali chimici presenti sulla cuticola dell'ospite. Può essere adattato alla sua temperatura corporea, alla sua umidità superficiale o alla sua struttura morfologica. Può inoltre dipendere da comportamenti particolari dell'ospite che facilitano la trasmissione.
Nel caso degli insetti sociali, la specificità può diventare ancora più complessa perché l'ectosimbionte non interagisce con un singolo individuo isolato, ma con una colonia.
Ectosimbionti e insetti sociali
Formiche, api, vespe e termiti costituiscono sistemi particolarmente interessanti per lo studio degli ectosimbionti.
Una colonia sociale rappresenta un ambiente ecologico molto più complesso rispetto al corpo di un singolo insetto.
Gli individui entrano continuamente in contatto tra loro, si puliscono reciprocamente, condividono cibo, trasportano materiali e utilizzano spazi comuni.
Questi comportamenti possono favorire la trasmissione degli organismi associati alla superficie corporea.
Un ectosimbionte presente su un singolo individuo può quindi avere accesso a una rete di potenziali ospiti.
La colonia diventa così una sorta di superficie dinamica collettiva.
Questo fenomeno è particolarmente importante nelle formiche, nelle quali la toelettatura sociale rappresenta contemporaneamente un sistema di difesa contro gli organismi esterni e un possibile meccanismo di distribuzione o selezione della comunità microbica.
La toelettatura come filtro ecologico
Gli insetti non sono ospiti passivi.
Molte specie dedicano una quantità considerevole di tempo alla pulizia del proprio corpo. Le zampe, le mandibole e altre strutture vengono utilizzate per rimuovere particelle, spore, piccoli artropodi e altri materiali.
Negli insetti sociali, la toelettatura può diventare ancora più sofisticata grazie all'allogrooming, cioè alla pulizia reciproca.
Questo comportamento costituisce un vero filtro ecologico.
Un ectosimbionte deve quindi superare una pressione selettiva costante per riuscire a rimanere associato all'ospite.
Gli organismi che hanno sviluppato strategie di adesione efficaci possono persistere più facilmente, mentre quelli incapaci di resistere alla rimozione vengono eliminati.
La superficie dell'insetto non è dunque un ambiente statico: è sottoposta continuamente all'azione comportamentale dell'ospite.
Microbiota superficiale e microbioma cuticolare
La comunità degli ectosimbionti non è costituita esclusivamente da organismi macroscopici.
Sulla superficie degli insetti possono vivere numerosi microrganismi, inclusi batteri e funghi.
Questa comunità microbica può interagire direttamente con la chimica della cuticola.
Gli idrocarburi cuticolari, oltre a svolgere funzioni fondamentali nella prevenzione della disidratazione e nel riconoscimento sociale, possono rappresentare substrati o segnali per alcuni microrganismi.
Il microbiota superficiale può inoltre contribuire alla produzione di molecole che influenzano altri organismi.
In alcuni sistemi sono state osservate associazioni nelle quali i microrganismi associati alla superficie contribuiscono alla difesa dell'ospite contro patogeni o competitori.
Si tratta di una dimensione dell'ectosimbiosi particolarmente importante perché amplia enormemente il concetto di organismo associato.
L'ectosimbionte non deve necessariamente essere visibile a occhio nudo.
Funghi e associazioni ectosimbiotiche
I funghi possono stabilire numerose interazioni con gli insetti.
Alcuni sono patogeni e penetrano attraverso la cuticola, altri vivono sulla superficie dell'ospite senza necessariamente provocare una malattia immediata.
La superficie dell'insetto può rappresentare una piattaforma di dispersione per le spore e un punto di contatto tra il fungo e un potenziale ospite.
In altri casi, invece, l'associazione può assumere caratteristiche mutualistiche.
Alcuni insetti hanno sviluppato relazioni estremamente sofisticate con funghi che vengono coltivati, trasportati o protetti all'interno di sistemi sociali.
In questi casi il confine tra ambiente esterno, superficie dell'ospite e microhabitat associato alla colonia diventa particolarmente interessante.
Ectosimbiosi e secrezioni dell'ospite
La superficie degli insetti non è costituita soltanto da cuticola.
Molte specie producono secrezioni che possono essere utilizzate da altri organismi.
Le ghiandole esocrine, le secrezioni cerose, i residui alimentari e altri materiali organici possono costituire risorse per piccoli organismi associati.
Questo è particolarmente evidente negli insetti che producono grandi quantità di sostanze zuccherine o cerose.
La disponibilità di tali risorse può attirare altri organismi e determinare comunità ectosimbiotiche complesse.
In alcuni casi l'ospite sviluppa addirittura strutture anatomiche o comportamentali che favoriscono intenzionalmente determinati associati.
Ectosimbiosi e mutualismo
Il mutualismo rappresenta uno degli estremi più interessanti dello spettro delle relazioni ectosimbiotiche.
In una relazione mutualistica entrambi gli organismi ottengono un vantaggio.
L'ectosimbionte può ricevere protezione, nutrimento o trasporto, mentre l'insetto può ottenere difesa contro patogeni, rimozione di organismi dannosi, protezione da predatori o altre risorse.
Un sistema mutualistico particolarmente complesso può diventare estremamente stabile nel corso dell'evoluzione.
In questo caso l'ectosimbionte non è più semplicemente un organismo che “vive sopra” l'insetto.
Diventa una componente funzionale dell'ecologia dell'ospite.
Dal parassita al mutualista: un continuum biologico
Le categorie ecologiche non sono sempre separate da confini netti.
Una relazione può modificarsi in funzione delle condizioni ambientali.
Un organismo normalmente commensale può diventare dannoso quando raggiunge densità elevate. Un microrganismo normalmente innocuo può diventare patogeno in un ospite debilitato. Un organismo che normalmente utilizza l'insetto come mezzo di trasporto può occasionalmente sfruttarne anche le risorse.
Per questo motivo è spesso più corretto concepire l'ectosimbiosi come uno spettro di interazioni.
A un'estremità troviamo il parassitismo fortemente dannoso, dall'altra il mutualismo obbligato. Tra questi estremi esistono numerose forme intermedie.
L'ectosimbionte come organismo specializzato
La specializzazione verso un ospite può produrre adattamenti evolutivi straordinari.
Quando un organismo trascorre gran parte della propria vita associato a una determinata specie, può perdere caratteristiche utili alla vita libera e sviluppare strutture specificamente adattate all'ospite.
Questo processo può influenzare:
la forma del corpo;
la struttura delle appendici;
la capacità di aderire alla cuticola;
la capacità di riconoscere segnali chimici;
la fisiologia osmotica;
la resistenza alla disidratazione;
il ciclo riproduttivo;
la sincronizzazione con il comportamento dell'ospite.
L'evoluzione dell'ectosimbionte è quindi profondamente condizionata dall'evoluzione dell'ospite.
Coevoluzione tra ospite ed ectosimbionte
Quando due organismi interagiscono strettamente per numerose generazioni, possono instaurare processi di coevoluzione.
L'ospite sviluppa difese contro l'ectosimbionte, mentre l'ectosimbionte sviluppa strategie per superarle.
Questo processo può generare una sorta di corsa agli armamenti evolutiva.
L'insetto può migliorare la propria toelettatura, modificare la composizione della cuticola o sviluppare comportamenti di riconoscimento.
L'ectosimbionte può rispondere sviluppando strutture di adesione più efficienti, capacità mimetiche o strategie chimiche per evitare il riconoscimento.
Nel corso del tempo, questa interazione può diventare estremamente raffinata.
Mimicry e integrazione nella superficie dell'ospite
Alcuni ectosimbionti hanno sviluppato forme di mimetismo che riducono la probabilità di essere riconosciuti.
In sistemi sociali questo aspetto assume una rilevanza particolare.
Un organismo che vive sulla superficie di una formica deve affrontare non soltanto le difese fisiche della propria ospite, ma anche il sofisticato sistema di riconoscimento sociale della colonia.
La capacità di acquisire o imitare segnali chimici dell'ospite può quindi diventare essenziale.
Gli ectosimbionti associati agli insetti sociali rappresentano pertanto esempi particolarmente interessanti di integrazione ecologica e chimica.
Gli ectosimbionti degli scarabei e degli insetti saproxilici
Gli insetti associati al legno morto offrono un ambiente particolarmente ricco di associazioni ectosimbiotiche.
Scarabei, coleotteri xilofagi e altri insetti saproxilici possono trasportare piccoli artropodi e microrganismi tra tronchi, cavità e materiale organico in decomposizione.
L'insetto diventa così un vettore biologico capace di collegare microhabitat differenti.
Questo fenomeno è particolarmente importante negli ambienti nei quali le risorse sono frammentate.
Un piccolo organismo che non possiede una capacità di dispersione sufficiente può sfruttare il movimento del coleottero per raggiungere un nuovo tronco.
La mobilità dell'ospite diventa quindi una componente essenziale del ciclo vitale dell'ectosimbionte.
L'ectosimbionte come passeggero evolutivo
La relazione foresica può essere interpretata come una forma di trasporto biologico specializzato.
L'ospite diventa un veicolo naturale.
La selezione favorisce gli individui capaci di individuare l'ospite appropriato, raggiungerlo nel momento opportuno e abbandonarlo quando raggiunge un ambiente favorevole.
Questa strategia può essere particolarmente vantaggiosa negli habitat temporanei.
Un organismo che vive in una carcassa, in un tronco marcescente o in un substrato in rapido cambiamento deve trovare rapidamente un nuovo ambiente quando quello originario diventa inadatto.
L'insetto mobile offre una soluzione evolutiva estremamente efficace.
Il ruolo delle dimensioni corporee
La piccola dimensione degli ectosimbionti è uno degli elementi fondamentali della loro biologia.
Riducendo le dimensioni corporee, un organismo può sfruttare microhabitat inaccessibili ai competitori più grandi.
Può inserirsi tra le setole dell'ospite, nelle articolazioni o in piccole depressioni della cuticola.
La miniaturizzazione consente inoltre di ridurre il rischio di essere facilmente rimosso durante i movimenti dell'insetto.
Tuttavia, le piccole dimensioni comportano anche svantaggi.
Un organismo minuscolo è maggiormente esposto alla disidratazione e alle variazioni microclimatiche.
La capacità di controllare il bilancio idrico diventa quindi fondamentale.
Umidità e microclima
Il microclima della superficie dell'ospite può essere molto diverso da quello dell'ambiente circostante.
Questo dipende dalla temperatura dell'insetto, dalla presenza di acqua, dalla struttura della cuticola, dalla densità delle setole e dal comportamento dell'ospite.
Un ectosimbionte deve quindi essere capace di sopravvivere a condizioni microclimatiche specifiche.
In alcuni casi può sfruttare le regioni più umide del corpo. In altri può cercare zone maggiormente protette.
Questa relazione tra fisiologia dell'ectosimbionte e microclima dell'ospite rappresenta un ulteriore esempio di come un organismo possa trasformare il corpo di un altro in un habitat.
La superficie dell'insetto come ecosistema
Considerando simultaneamente batteri, funghi, acari, piccoli artropodi e altri organismi, emerge una visione completamente diversa della cuticola.
La superficie di un singolo insetto può ospitare una comunità biologica complessa.
Questa comunità può essere strutturata spazialmente.
Alcuni organismi possono occupare le regioni dorsali, altri quelle ventrali, altri ancora le articolazioni o aree particolarmente ricche di secrezioni.
Le interazioni tra questi organismi possono essere indirette oppure dirette.
Un organismo può modificare il microambiente e rendere la superficie più favorevole a un altro.
La comunità ectosimbiotica può quindi essere considerata una microbiocenosi associata all'ospite.
Competizione tra ectosimbionti
Gli ectosimbionti non interagiscono soltanto con l'ospite.
Possono competere tra loro.
Due organismi possono utilizzare la stessa risorsa presente sulla superficie corporea oppure occupare lo stesso microhabitat.
Questa competizione può determinare la struttura della comunità.
Alcuni organismi possono produrre sostanze antimicrobiche che limitano la crescita di altri. Altri possono sfruttare aggressivamente le risorse disponibili.
Il corpo dell'insetto diventa così un ambiente nel quale esistono vere e proprie interazioni comunitarie.
Predazione tra ectosimbionti
La superficie dell'ospite può ospitare anche rapporti trofici.
Un acaro predatore può nutrirsi di piccoli organismi presenti sulla cuticola. Un microrganismo può competere con un altro per una risorsa.
Questo significa che l'insetto non costituisce soltanto il substrato della comunità, ma può rappresentare la base fisica sulla quale si sviluppano piccole reti alimentari.
La complessità ecologica aumenta ulteriormente quando l'ospite è inserito in un ambiente ricco di materiale organico.
L'ospite come confine mobile
Una delle caratteristiche più affascinanti dell'ectosimbiosi è che il confine dell'habitat diventa mobile.
Un tronco morto è statico.
Un'insetto che vive nel tronco può invece spostarsi.
Quando un ectosimbionte si associa a quell'insetto, acquisisce indirettamente parte della sua capacità di movimento.
L'organismo ectosimbiotico può quindi essere trasportato attraverso l'ambiente senza dover sviluppare una locomozione propria altrettanto efficace.
Questa strategia è particolarmente potente dal punto di vista evolutivo.
L'ectosimbionte sfrutta una capacità energeticamente costosa dell'ospite senza doverla sviluppare autonomamente.
L'ectosimbiosi come strategia di dispersione
La dispersione rappresenta uno dei principali problemi ecologici per gli organismi di piccole dimensioni.
Un organismo può avere accesso a una risorsa eccellente, ma se non riesce a raggiungere una nuova risorsa dopo il suo esaurimento, la popolazione rischia di scomparire.
L'associazione con insetti mobili risolve questo problema.
L'ospite può trasportare l'ectosimbionte verso nuovi habitat, aumentando enormemente la capacità di dispersione.
In questo senso la selezione naturale può favorire non soltanto la capacità di nutrirsi dell'ospite, ma soprattutto la capacità di utilizzare la mobilità dell'ospite.
Cicli vitali sincronizzati con l'ospite
Negli ectosimbionti altamente specializzati il ciclo vitale può essere sincronizzato con quello dell'insetto.
Il momento della riproduzione, la produzione di forme dispersive e l'associazione con determinati stadi dell'ospite possono essere strettamente coordinati.
Questo è particolarmente importante negli insetti che attraversano metamorfosi complete.
Il passaggio da larva a pupa e da pupa ad adulto modifica completamente il corpo disponibile per l'ectosimbionte.
Un organismo che vive sulla larva potrebbe non essere in grado di sopravvivere sulla forma adulta.
La selezione può quindi favorire strategie capaci di accompagnare l'ospite durante queste transizioni oppure di abbandonarlo temporaneamente.
Metamorfosi e trasmissione degli ectosimbionti
La metamorfosi rappresenta un vero ostacolo per gli organismi associati alla superficie degli insetti.
Durante la muta, l'insetto perde la vecchia cuticola.
Un ectosimbionte che rimane sulla superficie della cuticola eliminata rischia di perdere il proprio ospite.
Questo problema ha favorito l'evoluzione di strategie estremamente sofisticate.
Alcuni organismi possono spostarsi verso regioni protette prima della muta. Altri producono forme resistenti. Altri ancora sfruttano il contatto con altri individui per trasferirsi.
La muta diventa quindi un importante momento selettivo nella relazione ospite-ectosimbionte.
Trasmissione orizzontale e verticale
Gli ectosimbionti possono passare da un ospite all'altro attraverso differenti modalità.
La trasmissione orizzontale avviene tra individui appartenenti alla stessa generazione.
Il contatto diretto, la condivisione dell'ambiente, la toelettatura sociale e l'accoppiamento possono favorire il trasferimento.
La trasmissione verticale implica invece il passaggio da una generazione alla successiva.
Questa modalità può essere più stabile ma richiede meccanismi specifici per garantire che l'associato raggiunga la progenie.
La distinzione tra queste strategie è fondamentale per comprendere la stabilità evolutiva dell'ectosimbiosi.
Gli ectosimbionti degli insetti acquatici
Gli insetti acquatici offrono un contesto completamente diverso.
La superficie corporea è immersa in acqua o periodicamente esposta a essa, e le forze fisiche che agiscono sull'ectosimbionte sono differenti rispetto agli ambienti terrestri.
La corrente, la pressione e il movimento dell'acqua rendono particolarmente importante l'adesione.
Alcuni organismi possono vivere sulla superficie di larve acquatiche sfruttandole come substrato mobile.
Altri possono essere trasportati passivamente.
Anche in questo caso la relazione tra ospite e associato può essere interpretata come un'interazione tra un organismo e un microhabitat mobile.
Ectosimbiosi e cambiamenti ambientali
Gli ectosimbionti sono fortemente influenzati dalle condizioni ambientali perché dipendono sia dall'ospite sia dall'habitat dell'ospite.
Temperature elevate, siccità, piogge, cambiamenti nella disponibilità di risorse e modificazioni della vegetazione possono influenzare la frequenza delle associazioni.
Il cambiamento climatico può quindi modificare indirettamente anche le comunità ectosimbiotiche.
Se cambia la distribuzione dell'ospite, cambia anche quella dell'ectosimbionte.
Se l'ospite modifica il proprio periodo di attività, può cambiare anche la finestra temporale nella quale l'associazione può instaurarsi.
L'ectosimbionte diventa quindi parte di una rete ecologica nella quale ogni livello influenza gli altri.
Perché gli ectosimbionti sono importanti per l'entomologia
Lo studio degli ectosimbionti permette di superare una visione dell'insetto come organismo isolato.
Un insetto non è semplicemente un individuo appartenente a una specie.
È un organismo inserito in una rete di interazioni biologiche.
La superficie corporea costituisce uno dei principali punti di contatto tra l'insetto e questa rete.
Studiare gli ectosimbionti significa quindi studiare contemporaneamente anatomia, comportamento, ecologia, evoluzione, microbiologia e fisiologia.
È proprio questa interdisciplinarità a rendere l'ectosimbiosi un tema di grande interesse scientifico.
Una nuova concezione dell'individuo
La presenza di comunità microbiche e organismi associati sulla superficie corporea mette in discussione la concezione tradizionale dell'individuo biologico.
L'insetto può essere considerato un organismo autonomo, ma allo stesso tempo rappresenta l'habitat di numerosi altri organismi.
In determinati casi, alcuni di questi associati possono contribuire direttamente alla fisiologia o alla difesa dell'ospite.
Si crea così una realtà biologica nella quale i confini tra individuo e comunità diventano meno netti.
Questo concetto assume una rilevanza ancora maggiore negli insetti sociali.
Una colonia non è semplicemente la somma degli individui che la compongono.
È una rete di interazioni nella quale anche gli organismi associati possono partecipare indirettamente al funzionamento complessivo.
La complessità nascosta sulla superficie di un insetto
A prima vista, la superficie di una formica, di uno scarabeo o di un'ape sembra relativamente semplice.
Osservata con strumenti adeguati, può invece rivelare un ambiente straordinariamente complesso.
Setole, solchi, articolazioni, secrezioni e variazioni chimiche creano una struttura tridimensionale che può essere colonizzata da organismi di dimensioni microscopiche o quasi microscopiche.
Ogni regione può avere caratteristiche ecologiche differenti.
L'insetto diventa così una sorta di paesaggio biologico mobile.
La sua superficie non è soltanto il confine che separa l'organismo dall'ambiente.
È essa stessa un ambiente.
Conclusione
La diversità degli ectosimbionti degli insetti rappresenta una delle manifestazioni più complesse delle interazioni biologiche nel mondo degli artropodi.
Acari, microrganismi, funghi e numerosi altri organismi possono sfruttare la superficie degli insetti secondo strategie estremamente differenti. Alcuni dipendono dall'ospite come fonte alimentare, altri utilizzano il corpo come rifugio, altri lo trasformano in un mezzo di trasporto e altri ancora instaurano relazioni nelle quali entrambi gli organismi ottengono vantaggi.
La distinzione tra parassitismo, commensalismo, foresia e mutualismo permette di comprendere soltanto una parte della complessità del fenomeno. Dietro queste categorie esiste infatti un continuum di interazioni nel quale il vantaggio e il costo possono variare nel tempo e in funzione delle condizioni ambientali.
La superficie dell'insetto emerge così come un vero microhabitat, sottoposto alle pressioni selettive dell'ambiente e contemporaneamente alle difese comportamentali e fisiologiche dell'ospite.
Negli insetti sociali questa complessità raggiunge livelli ancora maggiori. La colonia può diventare un ambiente ecologico collettivo nel quale la trasmissione degli ectosimbionti è favorita dal contatto continuo tra individui, dalla condivisione degli spazi e dalla toelettatura sociale.
Studiare gli ectosimbionti significa quindi osservare l'insetto non più come un'entità isolata, ma come un organismo inserito in una comunità biologica estremamente complessa.
La cuticola diventa una frontiera, ma anche un habitat. Il corpo diventa substrato, rifugio, veicolo e, in alcuni casi, componente fondamentale di un'interazione mutualistica.
È proprio questa trasformazione concettuale a rendere l'ectosimbiosi particolarmente importante per l'entomologia moderna: per comprendere veramente un insetto non basta studiare ciò che avviene dentro il suo corpo. È necessario osservare anche tutto ciò che vive sopra di esso, accanto a esso e in relazione con esso.